尸体膝关节标本的测力试验显示,人体前交叉韧带(anterior cruciate ligament, ACL)在近伸直位承受胫骨前向力与内旋力矩组合加载时产生较高的整条韧带合力[4]。整条ACL的受力大小及其前内侧束(anteromedial bundle, AM)、后外侧束(posterolateral bundle, PL)之间的负荷分配,均随实际加载条件与屈膝角而改变[4,5,7,8,9]。
一、五类实验测量量的参考零点与物理解释
早期尸体膝关节标本的几何研究通过穿骨细钢丝记录附着点之间的路径长度变化。Amis与Dawkins将27具尸体膝中的ACL分为AM束、中间束和PL束,在路径长度试验(n = 9)中将细钢丝锚定于股骨附着并穿出胫骨附着中心骨道连接位移传感器,直接把0°完全伸直位定义为起算零点[1]。在0°—130°无约束被动屈伸中,三束路径在最后30°伸膝段均明显延长;从0°开始屈曲时三束均先缩短,AM束在约30°屈膝达最短(约−1.1 mm),随后在深屈膝时重新拉长至130°的约+2.8 mm(全范围变化约4 mm),而PL束持续缩短至约90°达最短(约−4.9 mm),130°时约为−3.9 mm[1]。施加±1 Nm轴向旋转力矩未引起各束长度显著改变,仅内旋较外旋在30°附近有使路径略长的趋势;在150 N胫骨前向载荷的逐束切断试验(n = 9)中,20°屈膝时PL束对前向阻力的贡献比例最大,90°屈膝时转由AM束占主要贡献,但原文图8在20°处三束平均贡献百分比读数之和约为104%—105%,超出100%总量,该图的分束具体百分比读数不能作为精确配比依据,仅能反映20°与90°之间主次束贡献方向的转换[1]。作者明确指出,以0°伸直位作为零点纯属人为设定,实验并未测定纤维脱离松弛状态的真实零张力长度,正、负毫米差值仅反映附着点距离相对0°的增减[1]。
为了测定关节内韧带纤维由松转紧后的局部相对形变,Fleming等在9具尸体膝(平均63岁)的AM束前表面安装霍尔效应应变传感器(Hall effect strain transducer, HEST),同时在HEST近端固定刺的近侧约2 mm处,将仅作受拉判据的力探针(implantable force probe, IFP)植入AM束纤维内;在30°屈膝施加前后向剪力循环时,由剪力—位移曲线松弛段作切线并取曲线偏离该切线的松紧转折点确定零应变参考长度l₀,结果与力探针检出的起拉点在参考长度(P = 0.24)及对应前向剪力(P = 0.47)上均无显著差异[2]。后续活体局麻关节镜研究沿用HEST或差动可变磁阻传感器(differential variable reluctance transducer, DVRT),按 ε = (l − l₀) / l₀ × 100% 计算AM束前表面局部工程应变,但各篇标定l₀的屈膝角(20°或30°)与前后向剪力范围并不统一[3,6,10]。这类数值仅反映AM束浅表局部纤维的形变,不代表PL束或整条ACL合力;ε 为负值仅说明局部纤维短于松紧转折点而处于松弛状态,并非承受压应力[2,3,6,10]。
尸体膝关节标本中整条ACL或分束原位力(N)的测量采用两类装置:Markolf等将尸体膝ACL胫骨骨柱游离连接三自由度测力计,在30°屈膝后方卸载位将电输出调零以读取整条ACL三维合力[4];Sakane等[5]、Li等[7]、Gabriel等[8]与Wu等[9]则利用六自由度机器人联合通用力—力矩传感器(universal force-moment sensor, UFS),先记录完整膝受载后的三维位置,再切断整条ACL或按序切断单束并严格重现原三维位置,由切断前后的力向量差值计算原位力。从韧带内部纵切无骨附着薄片的单轴拉伸试验则用于测定组织名义拉伸应力与模量(MPa)[12,13]。而在无创活体动态研究中,三维骨模型追踪与参考长度标定分属两个环节:研究者先由CT(Nagai等[14]、Kamada等[21])或MRI(Taylor等[11]、Englander等[15,18]、Foody等[19,20])重建股胫三维骨模型,以双平面X线透视(或经静态透视校准的皮肤标记动作捕捉)追踪骨骼运动;再将仰卧位MRI(0°—17°屈膝,其中Nagai等[14]以CT骨模型追踪、以仰卧完全伸膝MRI测定参考长度[11,14,15])或仰卧位CT(平均屈膝6.5° ± 3.5°[21])扫描姿势下的附着区中心距离设为l₀,计算动态相对伸长。由于静态仰卧扫描未测定松紧转折点,活体附着区相对伸长与穿骨钢丝路径变化(mm)、关节内局部工程应变(%)、尸体膝关节标本中的原位力(N)及ACL组织薄片拉伸应力(MPa)分属五类不同物理量并各有参考零点(表1),不同方法的数值不能直接换算,不同零点下的百分比也不能直接相加[1,2,4,12,15,16,17]。
表1 ACL张力与变形的五类实验测量方法对比
| 测量方法与物理量 | 参考零点定义 | 解剖采样范围 | 主要解读限制 |
|---|---|---|---|
| 穿骨钢丝路径变化(mm)[1] | 0°伸直位下的任意路径长度 | AM、中间、PL三束骨道中心连线 | 未测真实零张力长度;负值仅表示短于0°位置 |
| 关节内传感器局部工程应变(%)[2,3,6,10] | 20°或30°屈膝下剪力—位移曲线偏离松弛段切线的转折点 | AM束前表面局部浅层纤维 | 不代表PL束或整条ACL合力;负值表示松弛未受拉 |
| 尸体膝关节标本中的原位力(N)[4,5,7,8,9] | 30°后方卸载位调零(骨帽法)或切断前后力向量差(机器人法) | 整条ACL,或人为分离后的AM、PL束 | 尸体标本无神经肌肉反射;分束力受软组织保留与切束方式影响 |
| ACL组织薄片拉伸应力与模量(MPa)[12,13] | 0.1 N预载下的初始夹持标距 | AM、PL束纵切无骨止点薄片 | 切断横向交联且无骨块,模量与破坏应力较骨—韧带束低约一个数量级 |
| 活体3D骨模型附着区相对伸长(%)[11,14,15,18,19,20,21] | 仰卧MRI(0°—17°屈膝)或仰卧CT(6.5° ± 3.5°)附着区中心距离 | 整条ACL或按轴线中点50/50几何分割的两束中心连线 | 静态扫描未测松紧转折点;直线距离忽略纤维绕骨弯曲与扭转 |
二、被动屈伸、多平面外载下的原位力分配与两束材料力学
在不施加外源性胫骨前向力、轴向旋转力矩、内外翻力矩及模拟肌肉牵拉的条件下,Markolf团队于1990年[22]、1996年[23]和2008年[24]先后将ACL胫骨止点游离骨帽(亦称骨柱)与测力计相连,直接记录了尸体膝被动伸膝过程中的整条天然ACL合力。三项尸体膝关节标本实验一致观察到:即使无外加胫骨载荷与模拟肌力牵拉,整条天然ACL在屈膝大于10°的区间内仅维持低水平读数,而在最后10°伸膝段(10°至0°完全伸直)合力急剧上升;包含过伸测试的1990年[22]与1996年[23]两项研究在−5°过伸位测得的平均合力较0°时进一步升高(2008年研究[24]仅测120°至0°)。由于三项实验的标本年龄、夹具支撑方式不同,且部分研究未独立交代完整的0°判据与测力计调零姿位,各研究在0°附近的合力绝对值(N)不能直接横向等同,也不能拼合为活体静息膝关节的统一“正常张力值”[22,23,24]。同时,这类由尸体膝关节标本测得、无肌肉活动与地面反作用力的被动张力曲线不能用于将无创影像测得的活体步态附着区相对伸长(%)换算为韧带力(N),也不能脱离移植物骨道几何、初始固定刚度与生物重塑过程,直接把尸体天然ACL在大于10°屈膝时的低力状态折算为ACL重建术后的康复安全角度阈值[22,23,24]。
Markolf等1990年研究(NIH R01-AR37037资助)纳入17具新鲜冷冻尸体膝(供体年龄56—68岁),将包含ACL完整胫骨附着区的骨帽游离并固定于三分量测力计,在股骨固定、胫骨旋转不加约束、无股四头肌腱牵拉及无外加关节面接触力的条件下,手动对抗重力将胫骨从90°屈膝被动伸展至−5°过伸[22]。正文报告0°完全伸直位整条ACL合力的组均数为42 N(p565讨论),个体标本范围为16—87 N(p561结果);−5°过伸位组均数升至118 N(p557摘要),结果段报告个体范围为50—241 N(p561,摘要写为50—240 N)[22]。原文p561均值图仅显示−5°至45°区间(45°—90°未绘出):按图内“NO QUADRICEPS TENDON PULL”实心黑圆均值曲线读取,ACL合力由−5°与0°向屈曲方向迅速下降,10°屈膝时约为6 N,20°—45°区间保持在约3 N的低水平,表明原文所谓屈膝超过10°后韧带力“可忽略”对应的是数牛顿的低读数而非严格为零[22]。
该文p561与p562的图形和图注发生了排版互换:p561标为图2的图形实际绘出“有无200 N股四头肌腱牵拉”的两条组均值曲线,下方图注却描述全部标本的个体被动曲线;p562标为图3的图形实际绘出17具标本无股四头肌牵拉的个体曲线,下方图注反而描述两条均值曲线并声明误差条为均数的95%置信区间,结果段正文亦按错配图注引用两图,仅凭p561图内图例(“NO QUADRICEPS TENDON PULL, N = 17”)方可准确识别被动均值曲线[22]。0°完全伸直位的判据在文中前后不一,方法(p558)定义为施加2.5 Nm伸膝力矩所得的胫股角,讨论(p565)却改写为2 Nm;作者同时指出各标本后方关节囊松紧差异会改变力矩定义的0°位置,且全文未交代被动屈伸序列的测力计电调零姿位[22]。在标本筛选与台架校验上,讨论(p566)提及部分标本因骨帽固定失效被剔除却未报告初始标本总数;台架校验显示测力计通道交叉干扰在偏斜30°与45°时分别产生平均6%与12%偏差,另对3具标本施加200 N前向力的位移检验显示骨帽后移0.6—1.2 mm、周围次要结构分担2—18 N(作者据此估计前向加载下低估ACL力1%—9%)[22]。至于摘要与讨论将尸体天然ACL在大于10°屈膝时的低力状态直接推演为ACL修复或重建术后10°至全屈膝被动活动“安全”、早期康复应避免主动或被动伸膝至0°(p557,p565—566),这一推论缺乏术后临床随访验证,不能作为限制患者术后伸膝的依据[22]。
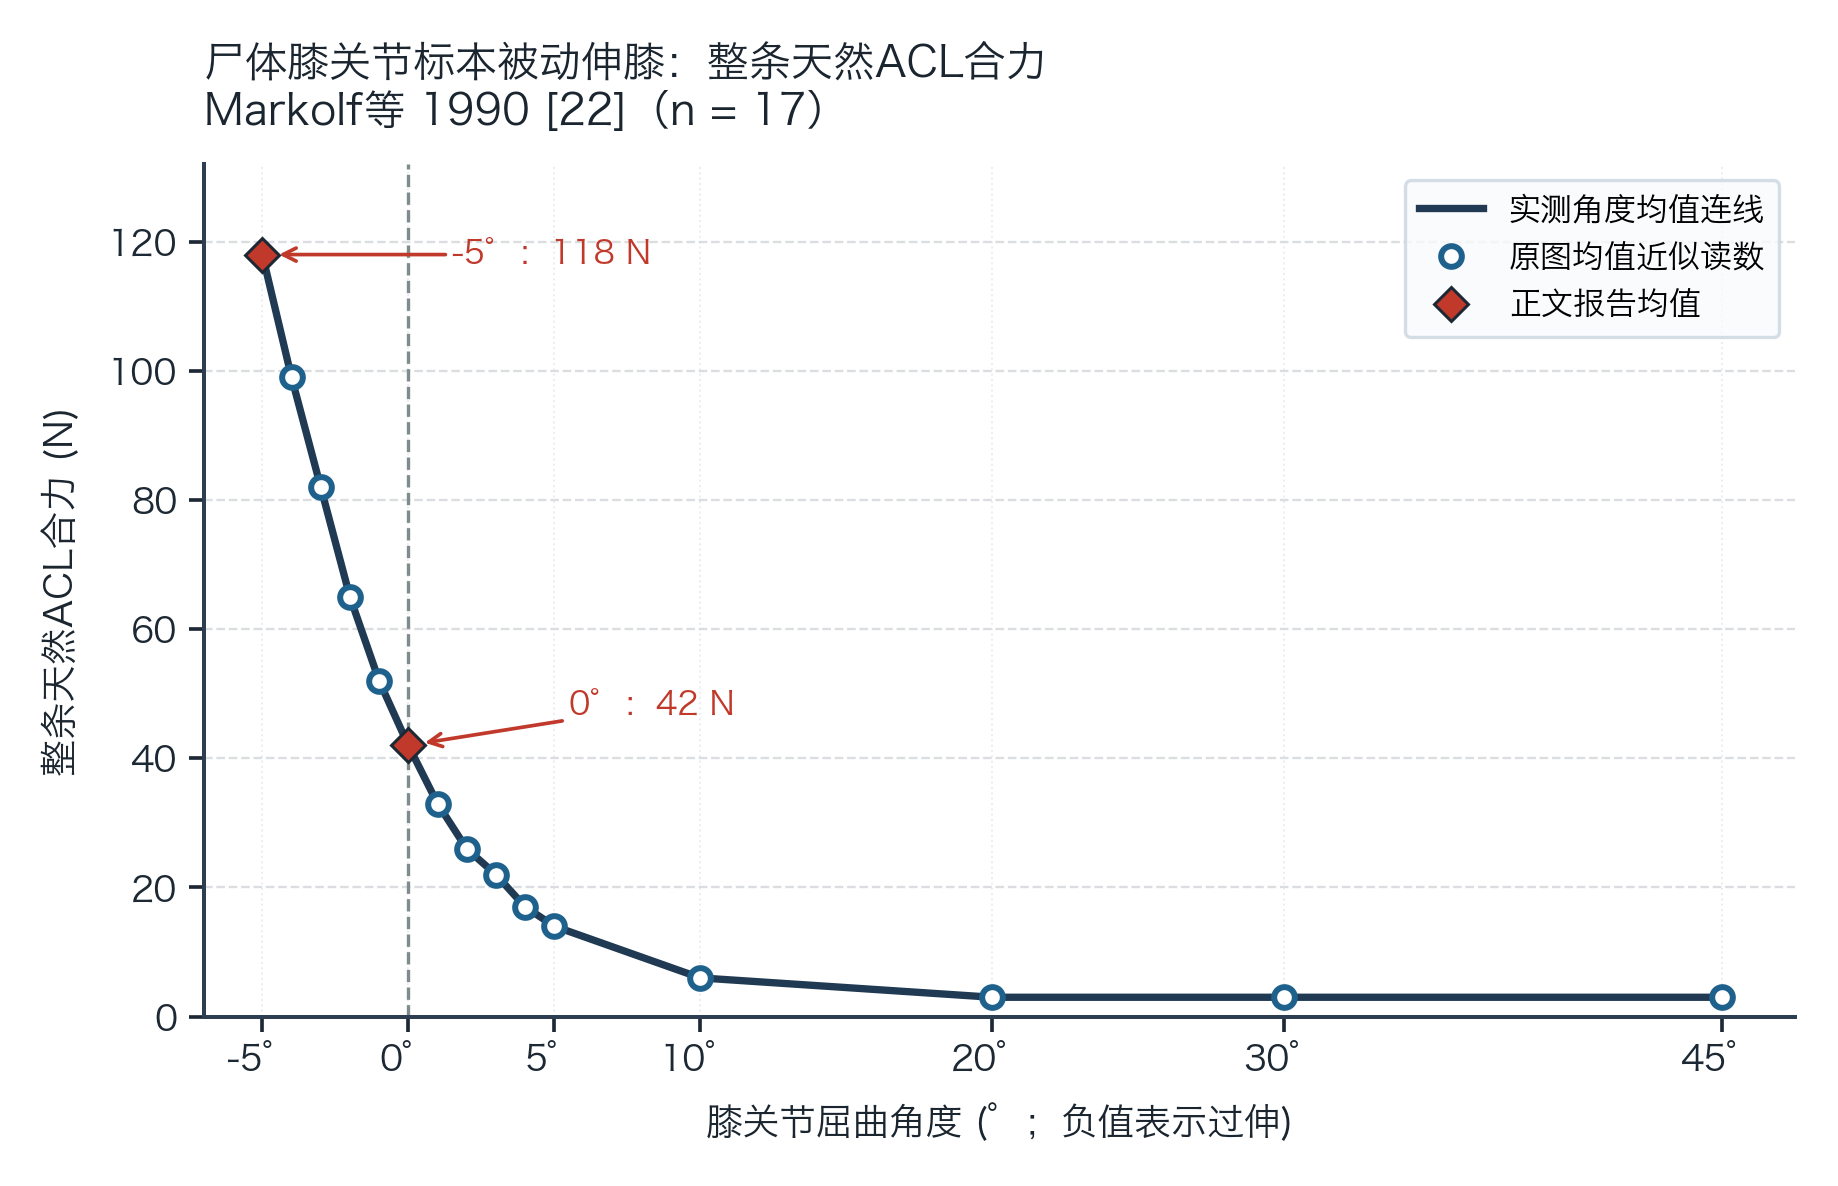
图1 尸体膝关节标本无外加胫骨载荷与股四头肌牵拉下被动伸膝的整条天然ACL合力(Markolf等 1990[22],n = 17,56—68岁)。 将胫骨止点游离骨帽与三分量测力计相连,直接测定整条ACL合力(N),股骨固定、手动将胫骨从90°屈膝伸至−5°过伸(胫骨旋转不加约束,原均值图仅显示−5°至45°)。菱形为正文报告均数(−5°为118 N,0°为42 N),圆点为原文p561标为图2的均值曲线近似读数(读图容差约±2 N;原文p561与p562图形和图注发生排版互换,本图仅重绘可由图内图例识别的均值点,未重绘原图误差条)。
Markolf等1996年第二部分研究(NIH R01 AR40330、Orthopaedic Research and Education Fund及Dorothy and Leonard Straus Fund资助,相关权益归入关联研究基金或非营利机构;同种异体髌腱由Musculoskeletal Transplant Foundation捐赠)将股骨固定于屈伸杆、胫骨远端延长杆借滚轮支撑于平行水平板之间(轴承壳与下托杆经滑轮配重平衡,允许胫骨轴向旋转及水平面内外翻),在无外加胫骨载荷、无模拟肌力的条件下以约10°/s手动将股骨从90°屈膝伸展至−5°过伸[23]。该文摘要虽称全研究共17具男性新鲜冷冻尸体膝、方法称主分析组13膝另加4具移植物骨道位置不佳标本,但p1730图3中天然ACL被动伸膝曲线(实心黑圆,图例“INTACT ACL (N = 12)”)的实际样本量为12膝[23]。在0°完全伸直位,摘要精确报告天然ACL平均合力为56 N,结果段(p1730)报告个体范围为18—110 N;按图3读取其余角度近似均值,−5°过伸位约为110 N,5°与10°屈膝分别降至约30 N与约20 N,20°—40°区间约为15 N,50°—90°区间约为10 N[23]。
该文讨论(p1733)将40°—90°的天然ACL力概括为“名义上为零”,但图3可见该区间均值点持续略高于零线(约10—15 N),只能按读图容差内的低水平力理解,既不能改写为精确0 N,也不能解释为活体韧带存在恒定的“基础预张力”[23]。此外,该分篇将标本制备与测力计安装指向同系列第一部分,未独立报告供体年龄、0°操作判据及测力计调零姿位;文中提及测试期间部分标本发生骨帽骨折或侧副韧带撕裂(p1729曾将失效骨帽表述为“ACL近端附着”,与摘要及引言所述测力计连接于胫骨侧[远端]止点骨帽不符),但未说明图3天然ACL曲线较主组13膝少1例的具体原因,且图3低力段向下的误差条(图注称为样本均数的一个标准差)与实心圆符号及横轴重叠、正文无逐角标准差数值表,故重绘时仅呈现均值曲线[23]。
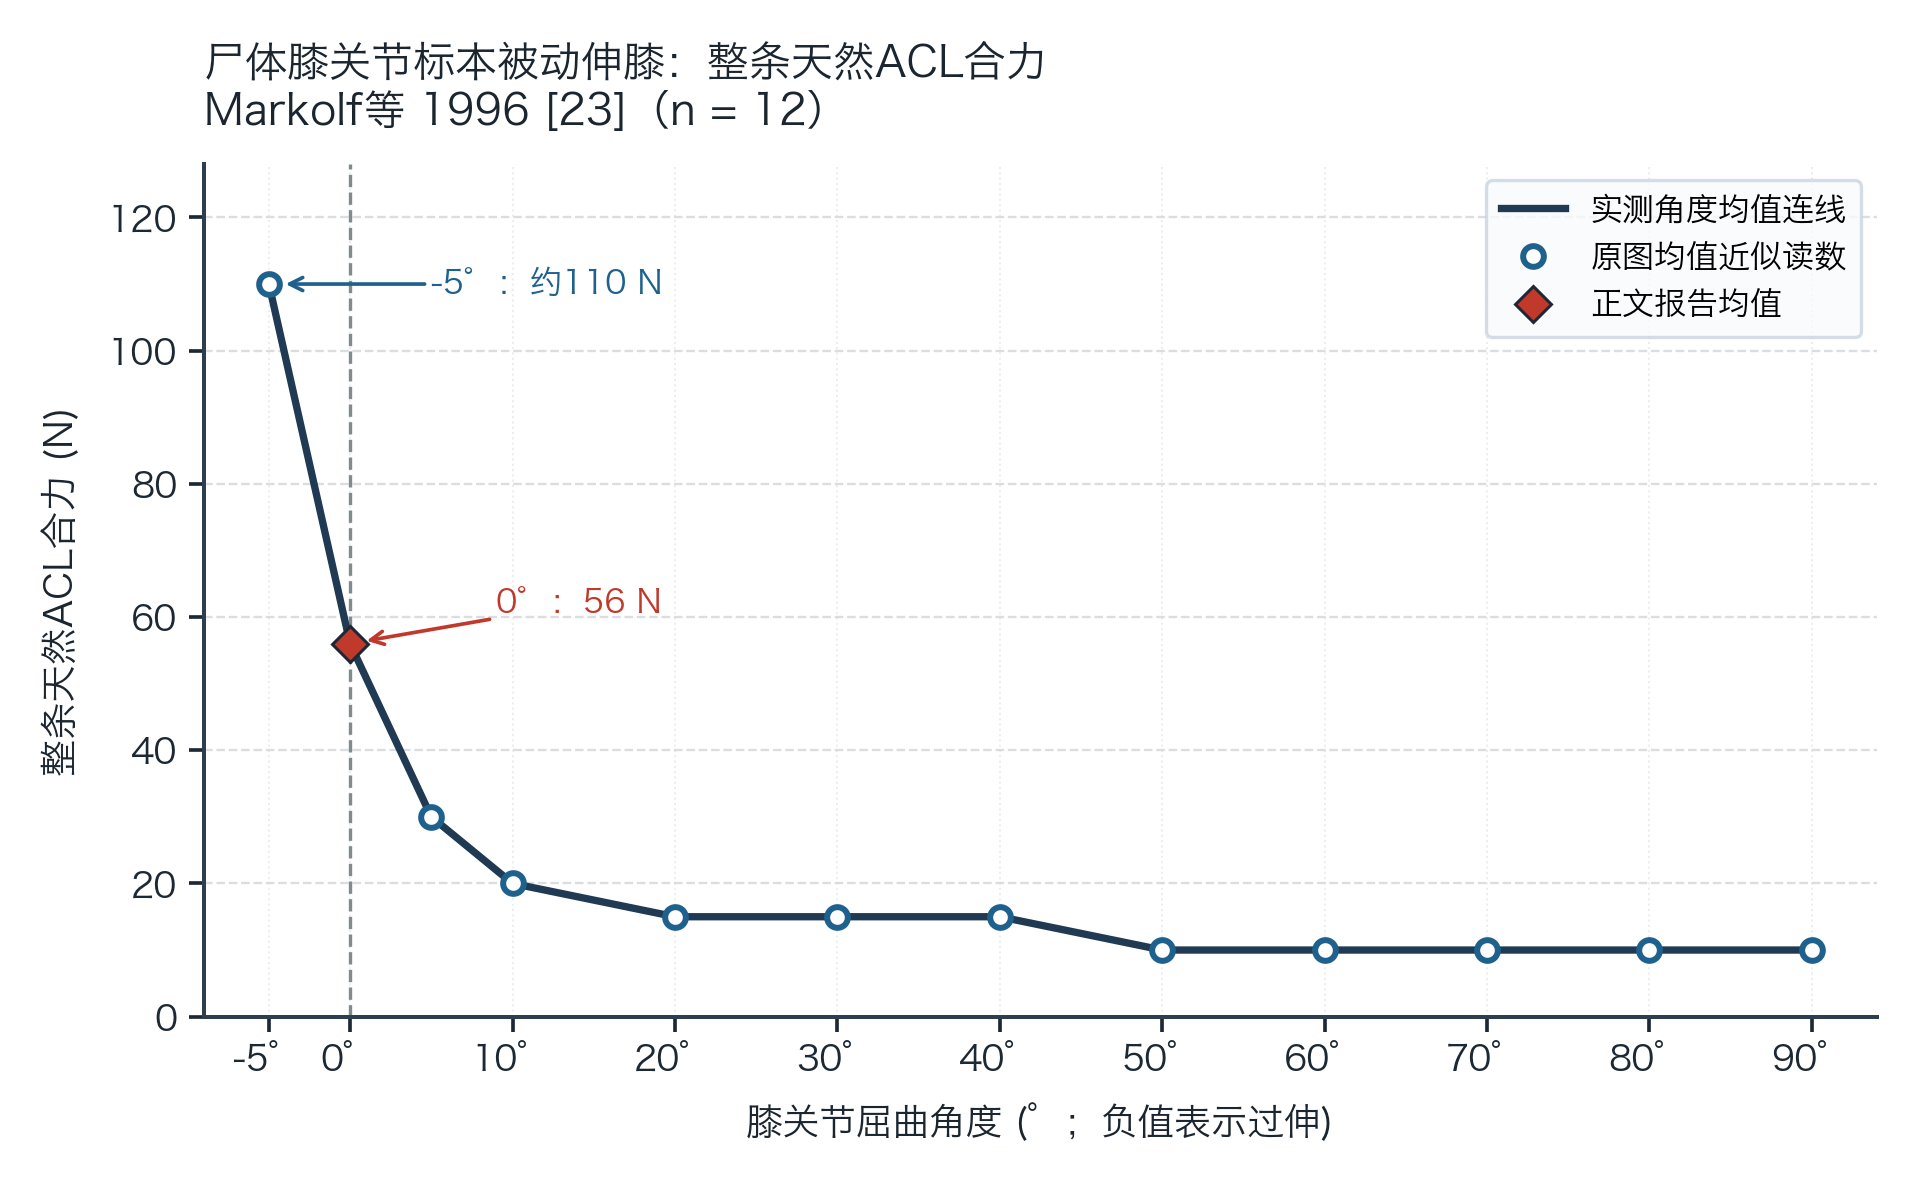
图2 尸体膝关节标本无外加胫骨载荷与模拟肌力下被动伸膝的整条天然ACL合力(Markolf等 1996[23],图3天然ACL实际n = 12)。 将胫骨止点游离骨帽与测力计相连,直接测定男性尸体膝整条天然ACL合力(N),胫骨保持水平并允许轴向旋转与水平面内外翻,以约10°/s手动将股骨从90°屈膝伸至−5°过伸。菱形为摘要报告的0°均数(56 N),圆点为原文p1730图3“INTACT ACL”均值曲线近似读数(按5 N取整,读图容差约±5 N;因原图低力段符号与误差条重叠且正文无逐角数值表,仅重绘均值点,未重绘原图误差条)。
Markolf等2008年研究(NFL Charities资助,Musculoskeletal Transplant Foundation提供组织材料)同样将胫骨止点游离骨帽与测力计相连,在12具男性新鲜冷冻尸体膝(平均年龄36.6 ± 9.6岁,范围17—46岁)中记录了从120°屈膝至0°完全伸直的被动伸膝合力(未测试过伸角度,被动伸膝期间胫骨内外旋与内外翻不加约束)[24]。该文未提供完整ACL在无外加胫骨力条件下的逐角数值表;按p806图2内下方的一组曲线(“No Anterior Force”)中完整ACL实心黑圆曲线读取近似均值,完整天然ACL合力在0°完全伸直位约为69 N(5°约26 N,10°约12 N),在30°—60°中等屈膝区间降至约3—4 N,75°—120°深屈膝区间维持在约7—8 N[24]。阅读该文摘要与结果段(p805—806)时必须区分:无外加胫骨力条件下正文精确报告的0°处“31 N”,是指在90°屈膝下从股骨外侧壁切下PL束纤维后,0°时ACL平均合力的下降量(对应图2中0°处由完整ACL约69 N降至PL束切断后空心圆约38 N的差值;图2所示离散比较角中仅0°与5°两处切束前后差异显著,10°及以上各点均标为无显著差异),绝不能把31 N误作完整ACL在0°的合力[24]。
该文的图表与文字报告亦有多处疏漏:摘要、方法与结果均写明测试动作为120°至0°的“被动伸膝”,图2至图5的标题与图注却全部误标为“被动屈膝”;p805摘要目的、引言目的与资助脚注,以及p806方法段(含两句)中均出现“移植物力(graft forces)”或“移植物组织(graft tissues)”字样,而实际实验仅测量切断PL束前后的天然ACL,并未实施移植物重建测试[24]。此外,图1(前后向松弛度)图注明确误差条为1 SD,图2图注与正文却未说明曲线上细小误差条的统计量类型,测力计调零与0°定义细节也仅指向既往文献[24]。在方法学推论上,作者于讨论(p807—808)中承认,将切断PL束后的力下降量等同于原PL束所受之力仅属粗略假定,且在90°屈膝下因髁间窝后方视野受限,分离PL束股骨附着时偶有可能误伤部分AM束纤维而夸大力下降幅度(该风险仅影响切束后差值,不影响切束前的完整ACL被动曲线)[24]。因此,该研究支持完整天然ACL在接近0°伸直时被动合力明显升高,但不能把31 N切束差值无条件等同于独立实测的PL束绝对力,也不能据此认定0°时PL束恒定承担整条ACL的一半负荷或直接设定双束重建的术中张力方案[24]。
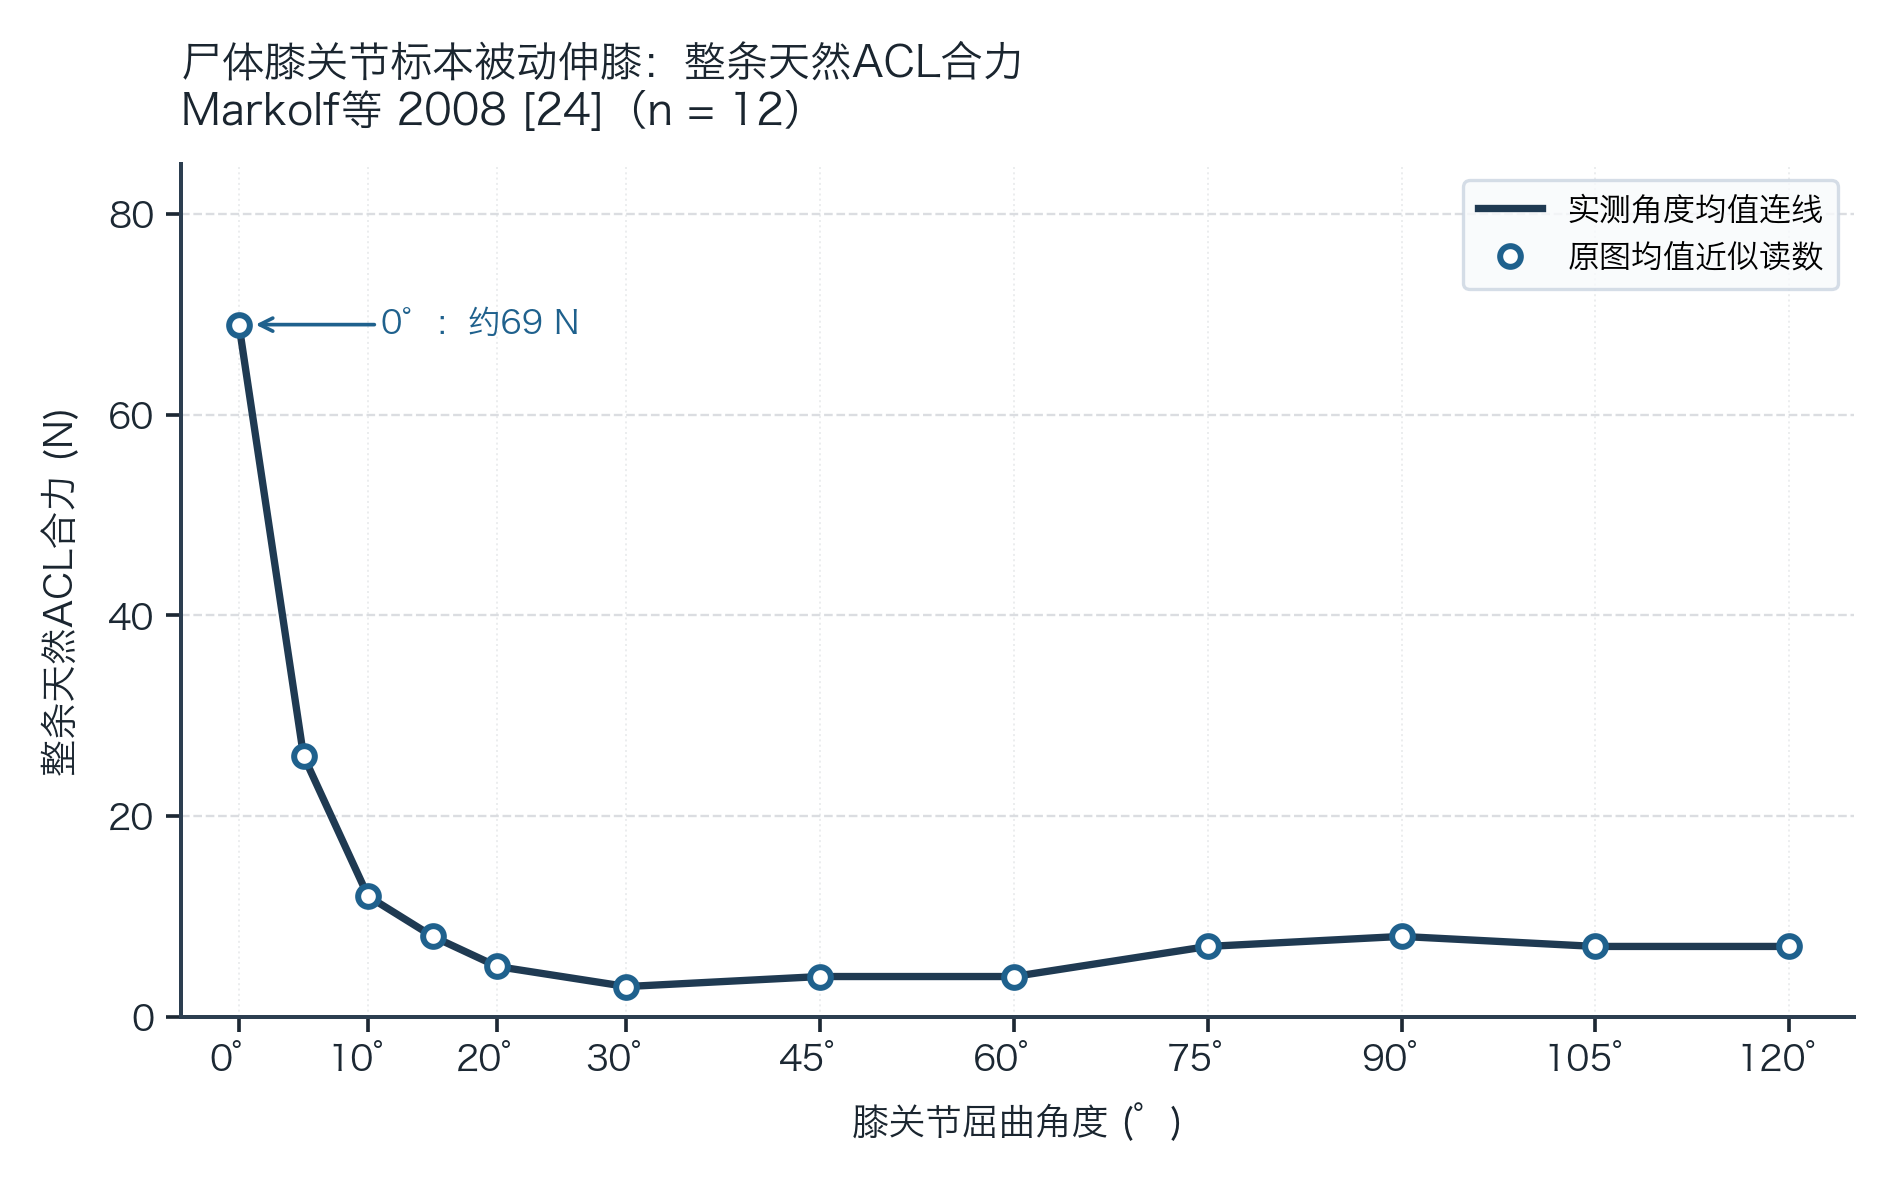
图3 尸体膝关节标本无外加胫骨载荷与模拟肌力下被动伸膝的完整天然ACL合力(Markolf等 2008[24],n = 12,男性,36.6 ± 9.6岁)。 将胫骨止点游离骨帽与测力计相连,直接测定完整天然ACL合力(N),在胫骨内外旋与内外翻不加约束条件下从120°屈膝被动伸膝至0°(未测试过伸)。圆点为原文p806图2内下方一组曲线(“No Anterior Force”)中的完整ACL均值曲线近似读数(读图容差约±2 N;因原文未说明图2误差条统计量类型,仅重绘均值点)。
在整条ACL合力水平上,Markolf等对14具尸体膝(50—78岁)从90°屈膝被动伸展至−5°过伸,测试了5种单独外载与8种两两组合载荷(高复合载荷下部分松质骨骨帽发生机械失效,有效样本n = 12—14,原文未逐例对应各图缺失标本)[4]。施加单纯100 N胫骨前向力时,ACL合力(均数 ± SD,带“约”数值为原图均值曲线读数)由30°屈膝的约100 N升至0°的约150 N及−5°过伸的约175—185 N;单纯10 Nm内旋力矩在0°与−5°即产生约220—230 N与约240—250 N合力,单纯10 Nm外翻力矩在各角度产生约40—85 N合力[4]。两项载荷组合的效应随屈膝角发生转折:100 N前向力叠加10 Nm内旋在<20°显著高于单纯前向力(0°约270 N,−5°近300 N,为全实验最高负荷),在20°—40°无显著差异,>40°较深屈膝时反而使ACL合力低于单纯前向力;100 N前向力叠加10 Nm外旋则在>10°显著降低ACL力[4]。相比之下,100 N前向力叠加10 Nm外翻在>5°全范围均显著抬高合力(20°—30°达约200 N),10 Nm内旋叠加10 Nm外翻在10°—70°亦高于单纯内旋[4]。作者提出近伸直内旋时ACL可能缠绕紧张的后交叉韧带(PCL)、外旋时内侧副韧带(MCL)可能分担前向力,但实验未直接测定PCL或MCL张力[4]。
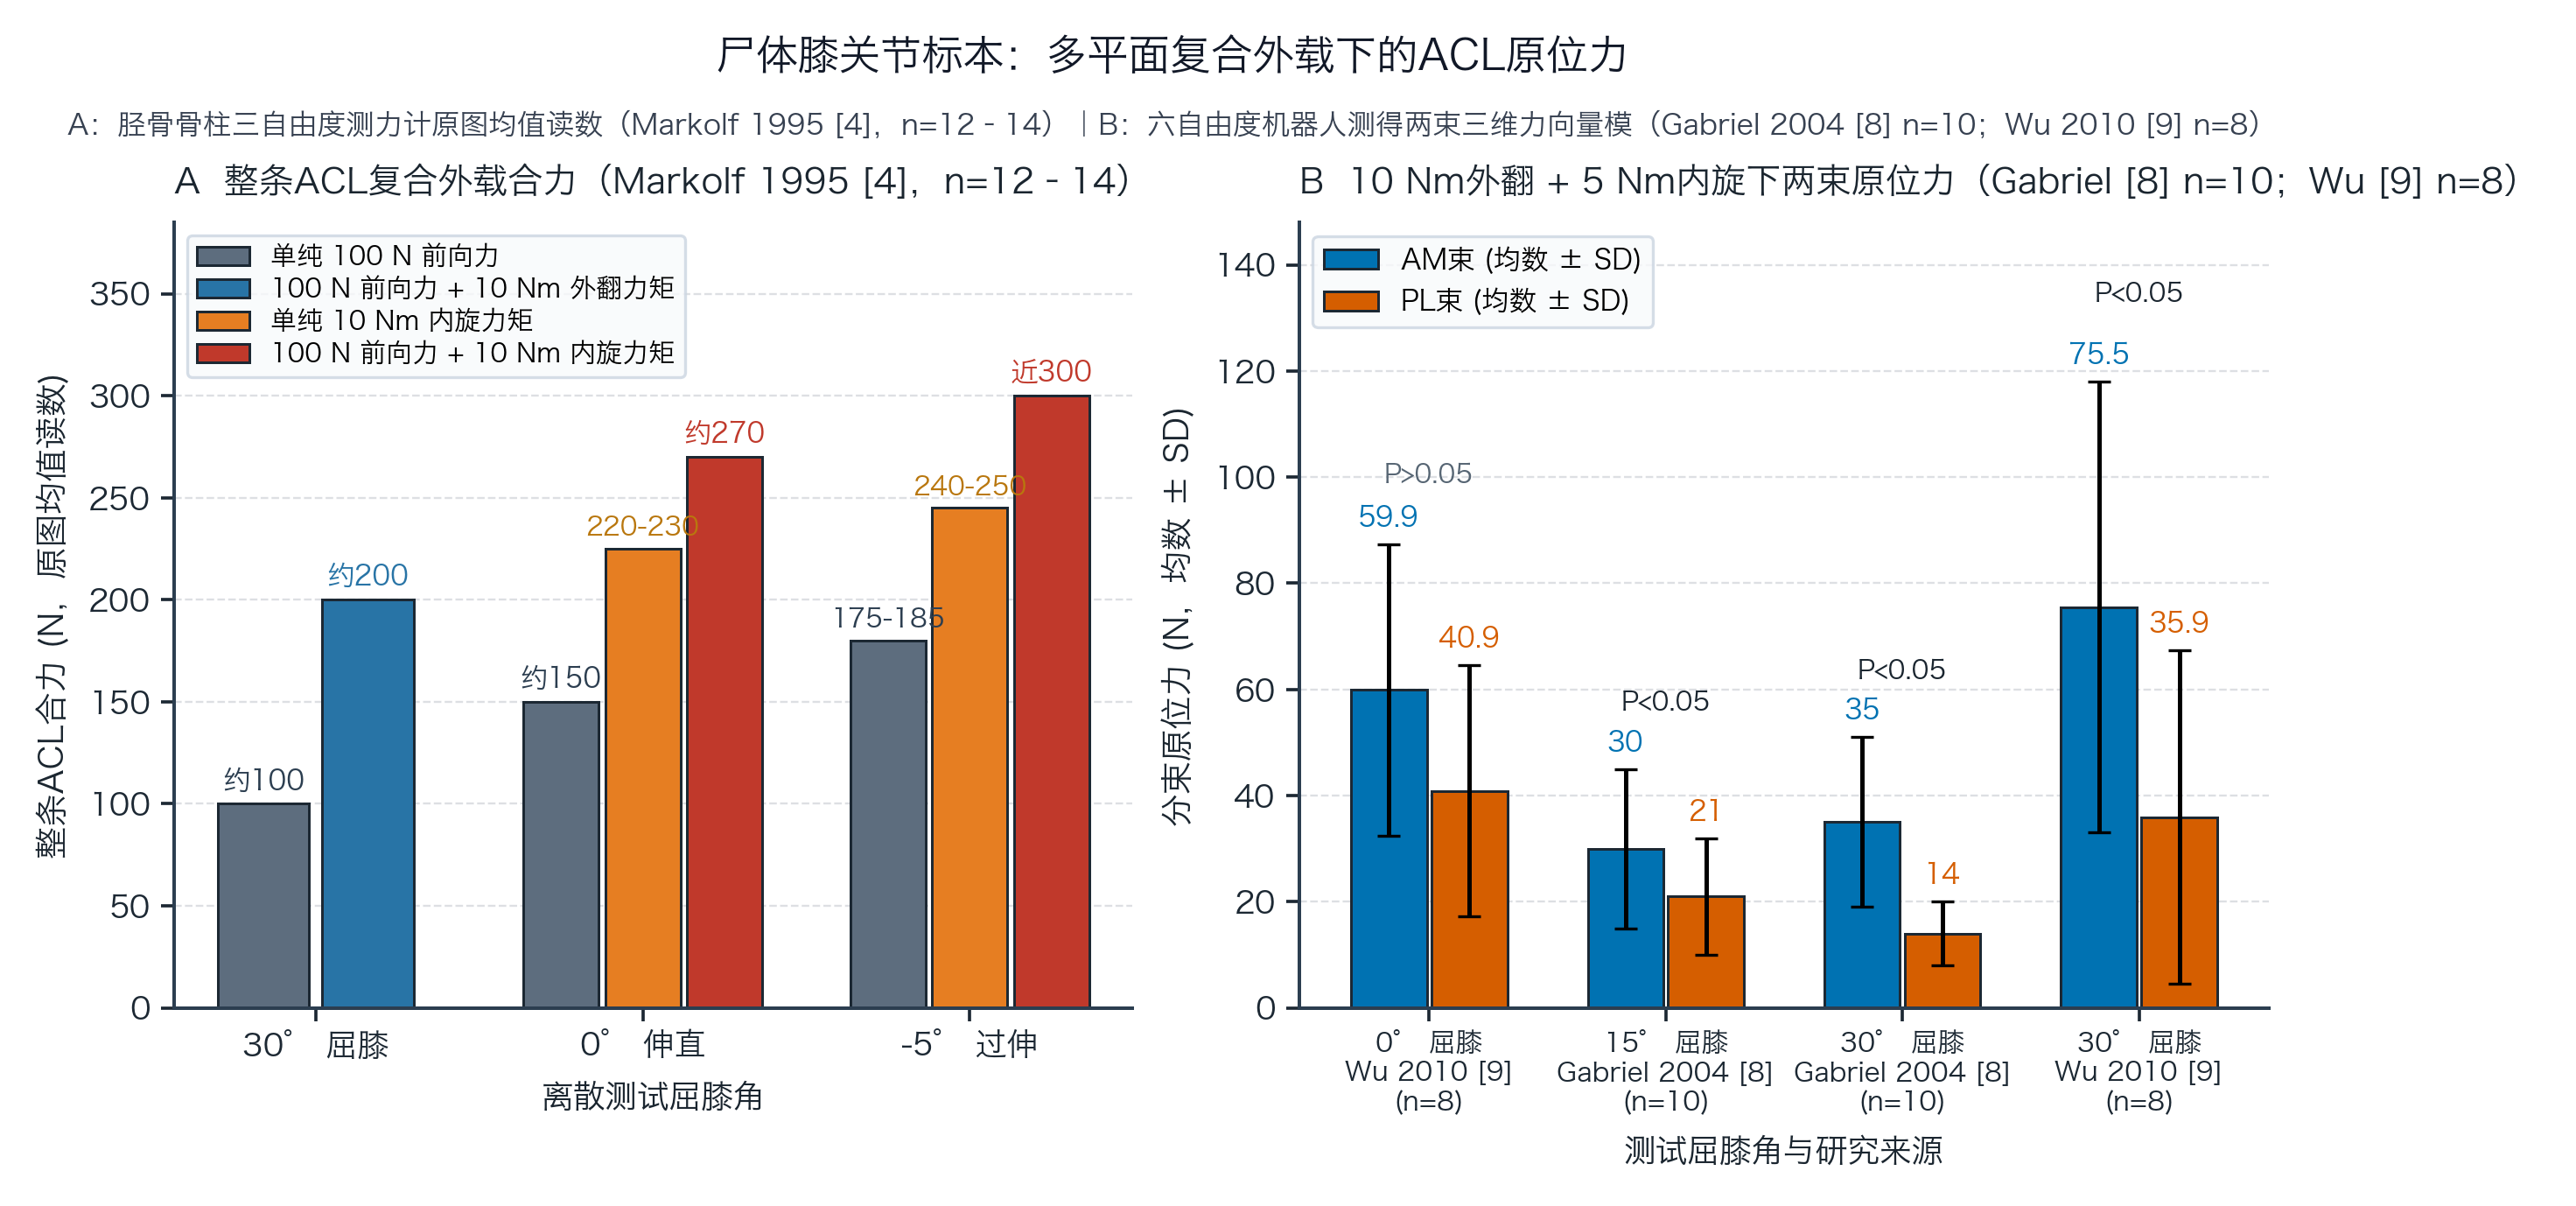
图4 尸体膝关节标本在多平面复合外载下整条ACL(A)与AM、PL两束(B)的原位力。 A为Markolf等 1995[4](n = 12—14)以胫骨骨柱三自由度测力计在30°屈膝、0°伸直与−5°过伸下测得的整条ACL合力原图均值近似读数(N,无误差条),对比单纯100 N前向力、100 N前向力加10 Nm外翻力矩、单纯10 Nm内旋力矩,以及100 N前向力加10 Nm内旋力矩四类加载条件。B为六自由度机器人联合UFS在10 Nm外翻加5 Nm内旋复合力矩下测得的AM束与PL束三维力向量模(N,均数 ± SD;Gabriel等 2004[8] n = 10报告15°与30°,Wu等 2010[9] n = 8报告0°与30°)。
为明确AM束与PL束在胫骨前向载荷与旋转载荷下各自承担的份额,Sakane等[5]、Gabriel等[8]与Wu等[9]利用六自由度机器人联合UFS测定了两束原位力(表2)。在110 N或134 N前向载荷下,Sakane等与Gabriel等测得整条ACL合力均在15°屈膝达峰(分别为110.6 ± 14.8 N与119 ± 24 N,Wu等仅报告分束力);三项研究中PL束原位力均在0°—15°近伸直位最高、随屈膝加深显著减小(Sakane等在110 N下90°时PL束仍保留26.2 ± 14.4 N)[5,8,9]。
表2 三项六自由度机器人测定ACL两束原位力研究对比
| 比较项 | Sakane 1997[5] | Gabriel 2004[8] | Wu 2010[9] |
|---|---|---|---|
| 标本与软组织 | 9膝(平均71岁);前方切开,留半月板与侧副韧带 | 10膝(报50 ± 10岁);测运动后切其余软组织,带骨块切束 | 8膝(平均55岁);股骨止点交替切束并缝合,留周围软组织 |
| 原位力定义 | 整条ACL合力轴线上的投影 | 三维力向量模 | 三维力向量模 |
| 前向载荷(110或134 N) | 110 N:0°、15°时PL > AM(15° PL 75.2 ± 18.3 N),60°时AM(47.4 ± 34.2 N)> PL;AM角度间无显著差异 | 134 N:0°时PL(67 ± 30 N)> AM(48 ± 16 N),15°无显著差异,30°—60°时AM > PL(60°峰90 ± 17 N) | 134 N:0°—90°全部5个角度均AM > PL;AM 30°达峰123.7 ± 26.3 N,PL 0°达峰51.3 ± 19.5 N |
| 旋转或肌力载荷 | 未测旋转或肌力 | 10 Nm外翻 + 5 Nm内旋:15°与30°均AM > PL | 10 Nm外翻 + 5 Nm内旋:0°无显著差异,30° AM > PL;400 N股四头肌:0°—90°两束无显著差异 |
| 主要方法与报告限制 | 图6的45°为30°与60°连线交点,非实测角度 | 若年龄±10岁指SD则与样本极值不相容;图2含未说明的120°;误述Sakane手术方式 | 复合旋转方法列5个角度,结果与图4仅报0°与30° |
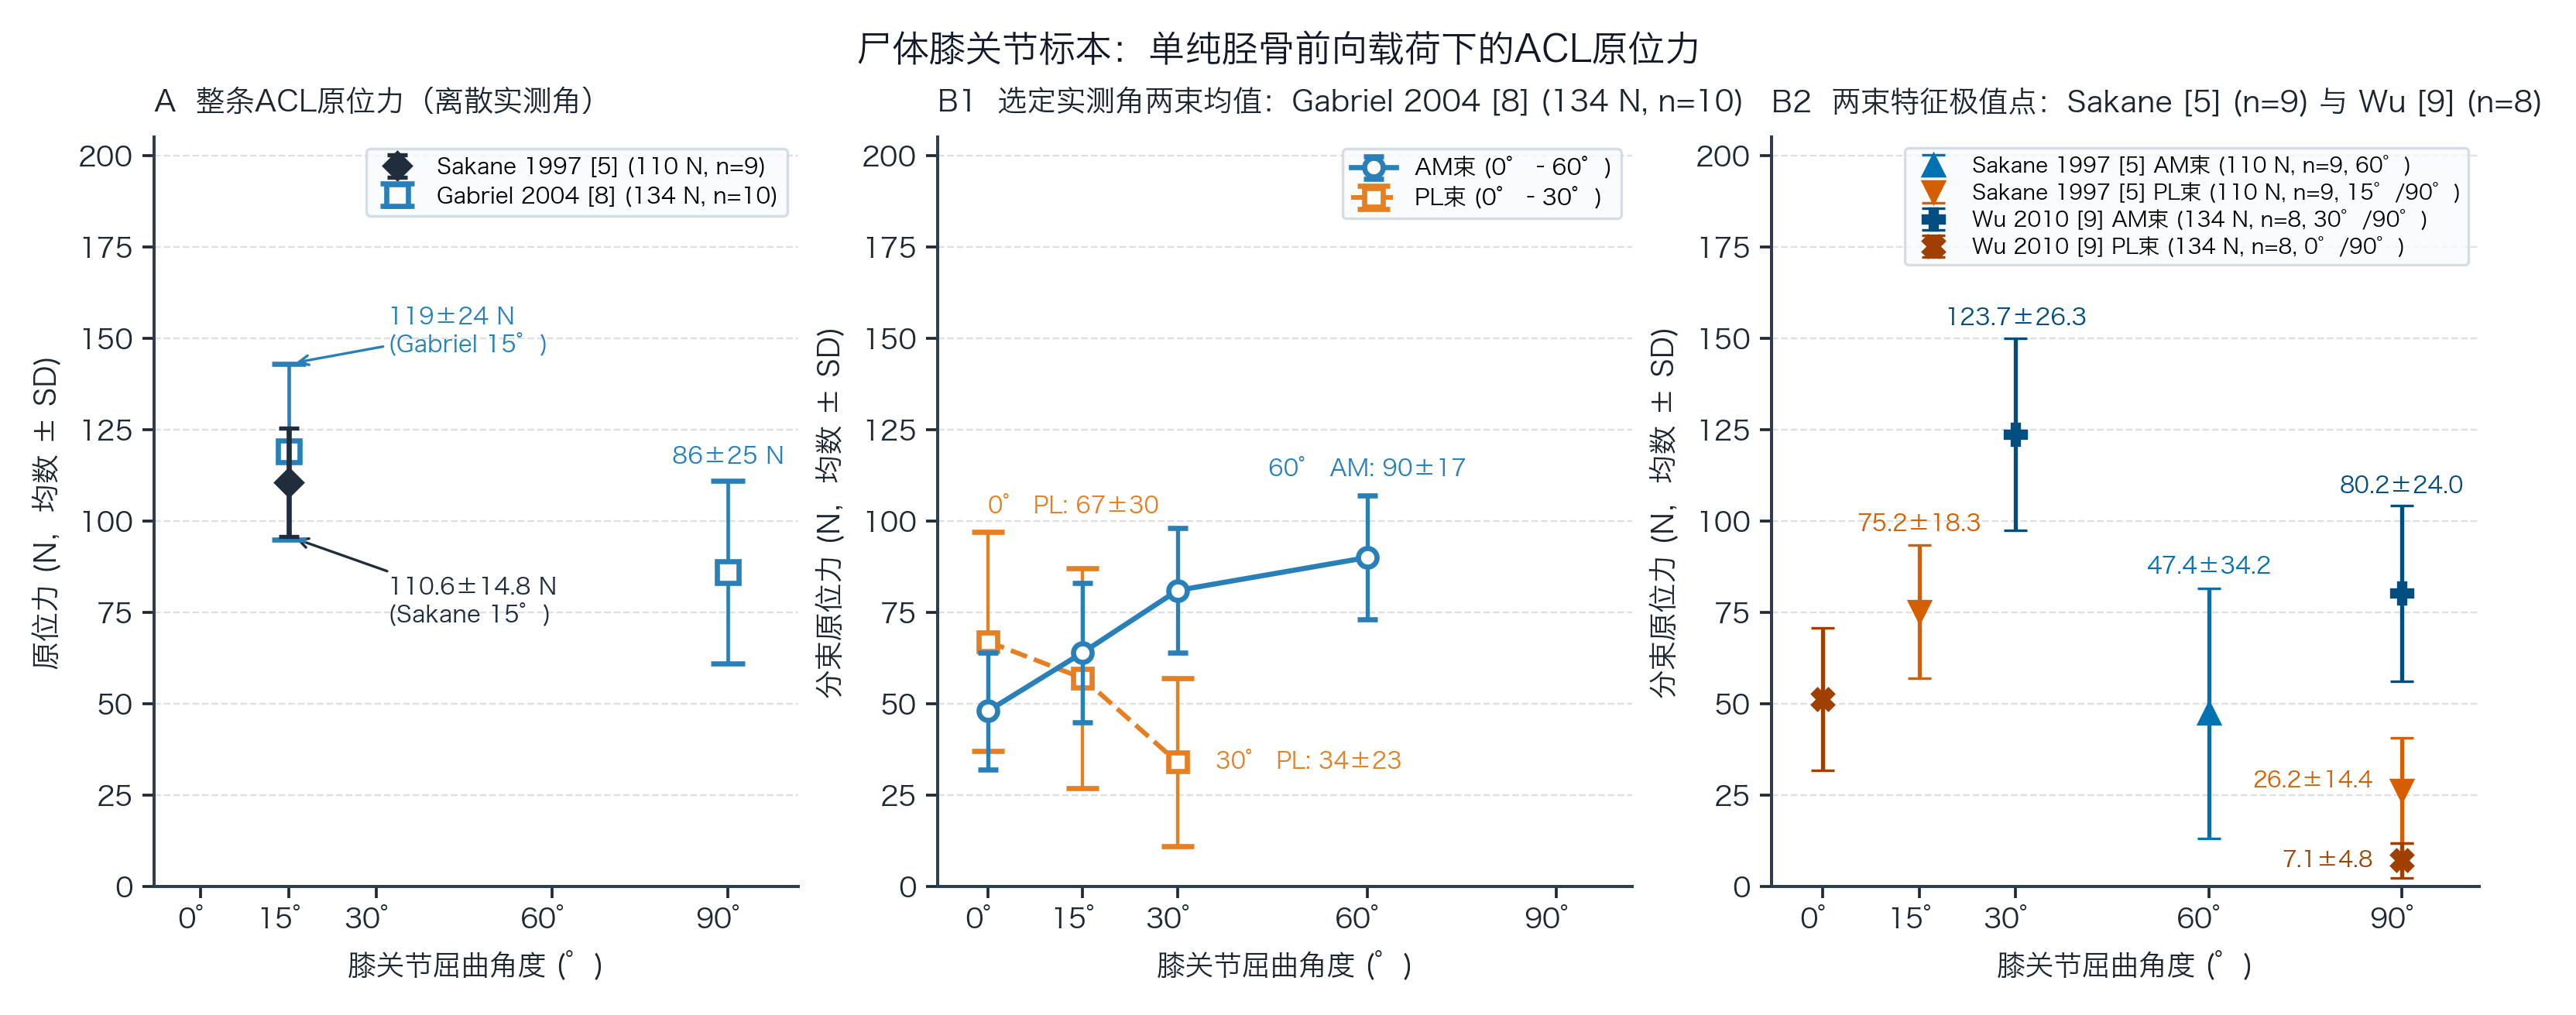
图5 尸体膝关节标本在单纯胫骨前向载荷下整条ACL(A)与AM、PL两束(B1、B2)的原位力(六自由度机器人联合UFS测定,N,均数 ± SD)。 横轴按0°、15°、30°、60°、90°屈膝角定位。A为Sakane等 1997[5](110 N,n = 9)与Gabriel等 2004[8](134 N,n = 10)在各离散实测屈膝角测得的整条ACL原位力;B1为Gabriel等 2004[8](134 N,n = 10)选定实测屈膝角的两束均数连线;B2为Sakane等 1997[5](110 N,n = 9,计算整条ACL合力轴线投影)与Wu等 2010[9](134 N,n = 8,计算三维力向量模)正文报告的两束达峰角峰值及90°深屈膝读数。
三项研究在近伸直位主次束排序上并不一致:数学上,Sakane等取分束力在整条ACL合力轴线上的投影,会折减偏离主轴的分束力分量,而Gabriel等与Wu等计算三维力向量模,保留了全部正交分量;此外,三项研究在标本平均年龄(71岁对50—55岁)以及复演运动时是否保留周围软组织与关节面接触上也存在设计差异,这些因素均可能影响跨研究比较,但现有实验未直接检验它们是否造成分束排序不同[5,8,9]。Sakane等还报告110 N前向载荷下AM束力向量与胫骨平台的夹角α由0°的22.8° ± 6.6°降至90°的7.4° ± 14.6°(P < 0.05),而PL束夹角无显著改变;其AM束原位力在0°对60°(P = 0.105)及15°对90°(P = 0.548)间未见显著差异[5]。在10 Nm外翻加5 Nm内旋力矩下,0°时两束无显著差异(Wu等:59.9 ± 27.5 N对40.9 ± 23.7 N),15°与30°时AM束显著高于PL束(Gabriel等在15°为30 ± 15 N对21 ± 11 N、30°为35 ± 16 N对14 ± 6 N;Wu等在30°为75.5 ± 42.5 N对35.9 ± 31.4 N);在400 N股四头肌加载下(Wu等),两束在0°—30°均明显受载(AM 15°峰75.2 ± 48.7 N,PL 30°峰51.5 ± 41.6 N),至60°—90°均降至25 N以下[8,9]。此外,Gabriel等方法(p86)所列年龄“50 ± 10岁(46—66岁)”若代表样本标准差,则在n = 10、极值46—66岁下数学上不可能成立(最大可能SD ≈ 8.43岁);图2(p87)绘出了正文未说明的120°柱形;讨论(p88)还将Sakane等的前方关节切开误述为关节镜操作[5,8]。
在微观组织材料水平上,Skelley等[12]与Castile等[13]使用同一批16个尸体ACL(11名供体,平均41岁,OREF资助),从每束顺纤维方向纵切无骨附着薄片(共制备96条,剔除夹具处直接断裂试样,但未报告各束剔除数与最终有效样本量)。每条试样经10次0%—3%三角波应变预调理后,先拉至5%名义夹具应变保持300 s测定应力松弛[13],卸载恢复60 s(未量化恢复程度)后再准静态拉至破坏并采集定量偏振光成像(qPLI)[12]。在准静态拉断阶段,Skelley等正文方法与图注规定以中位数及四分位距表示并用Mann–Whitney检验比较两束(摘要却写为t检验,p933破坏应力文字写为mean,且未交代同一膝及双侧供体相关性的处理):AM束的趾区模量(7.2 MPa对4.2 MPa,P < 0.001)、线性区模量(27.0 MPa对16.1 MPa,P = 0.017)和峰值力点破坏应力(2.8 MPa对2.0 MPa,P = 0.021)均显著高于PL束,双直线拟合的转换应变无显著差异(P = 0.156)[12]。qPLI显示零应变时两束平均线偏振度(AVG DoLP)与偏振角标准差(SD AoP)无显著差异;受载后AM束在线性区(0.22对0.19,P = 0.036)与破坏点(0.23对0.19,P = 0.016)的AVG DoLP更高,且转换点、线性区(其中线性区为18.4°对22.5°,P = 0.014)与破坏点(18.6°对22.8°,P = 0.010)的SD AoP更小,支持AM束在拉伸下胶原纤维取向更一致[12]。
在300 s定应变应力松弛阶段,Castile等采用限制性最大似然线性混合模型处理同一ACL与双侧供体相关性并报告中位数:AM束在0 s峰值应力(0.31 MPa对0.16 MPa,P = 0.049)与300 s末应力(0.21 MPa对0.10 MPa,P = 0.004)上均显著高于PL束,而单试样300 s内应力相对下降百分比的中位数在PL束略高(35.1%对32.6%,P = 0.016;300 s末应力仍在下降,未达真正平衡)[13]。不过,该文结果与图5A显示AM束在0 s(0.215对0.170,P = 0.020)和300 s末(0.208对0.168,P = 0.021)的绝对AVG DoLP更高,但300 s期间AVG DoLP总体相对下降幅度在两束间并无显著差异(AM 2.3%对PL 1.1%,P = 0.065),其讨论部分却矛盾地声称AM束的总体DoLP变化幅度显著更大[13]。由于纵切薄片切断了束间横向交联且无骨块附着,其模量与破坏应力较带骨块的韧带束标本低约一个数量级,仅适用于同体系内的两束相对比较[12]。
三、肌肉收缩、关节承重与康复动作中的ACL负荷调节
膝关节周围主动肌群通过改变胫骨前后向剪力与旋转位置直接调节ACL负荷。Li等在10具尸体膝(42—72岁)上利用六自由度机器人联合UFS,比较了单纯200 N股四头肌牵拉与200 N股四头肌叠加80 N腘绳肌协同牵拉(均沿股骨长轴施加)[7]。单纯200 N股四头肌加载下(均数 ± SD),胫骨前移在30°屈膝达峰值5.3 ± 2.1 mm,而整条ACL原位力在0°为27.8 ± 9.3 N、在15°屈膝达峰值44.9 ± 13.8 N(显著高于所有其他角度,P < 0.05,原文图6),至90°与120°深屈膝时降至约10 N,说明最大胫骨前移与最大ACL原位力并不必然出现在同一屈膝角[7]。叠加80 N腘绳肌牵拉后,胫骨前移在30°—120°显著减小(30°时降至4.3 ± 1.5 mm,伴随内旋由7.5° ± 4.3°降至5.1° ± 2.3°),整条ACL原位力在15°、30°与60°显著降低,其中15°屈膝时降至34.7 ± 11.8 N(较单纯股四头肌加载下降23%,原文图6),而在0°、90°与120°未见显著差异[7]。原文摘要末句称叠加腘绳肌使15°原位力下降30%,但按结果段实测均数(44.9 N降至34.7 N)及图6计算实际降幅为23%,摘要的30%夸大了15°浅屈膝位腘绳肌共收缩的卸载幅度;同时,该实验仅在带完整ACL的尸体膝上施加恒定轴向肌力,讨论中关于术后早期在>60°深屈膝训练的建议未经术后临床试验验证[7]。
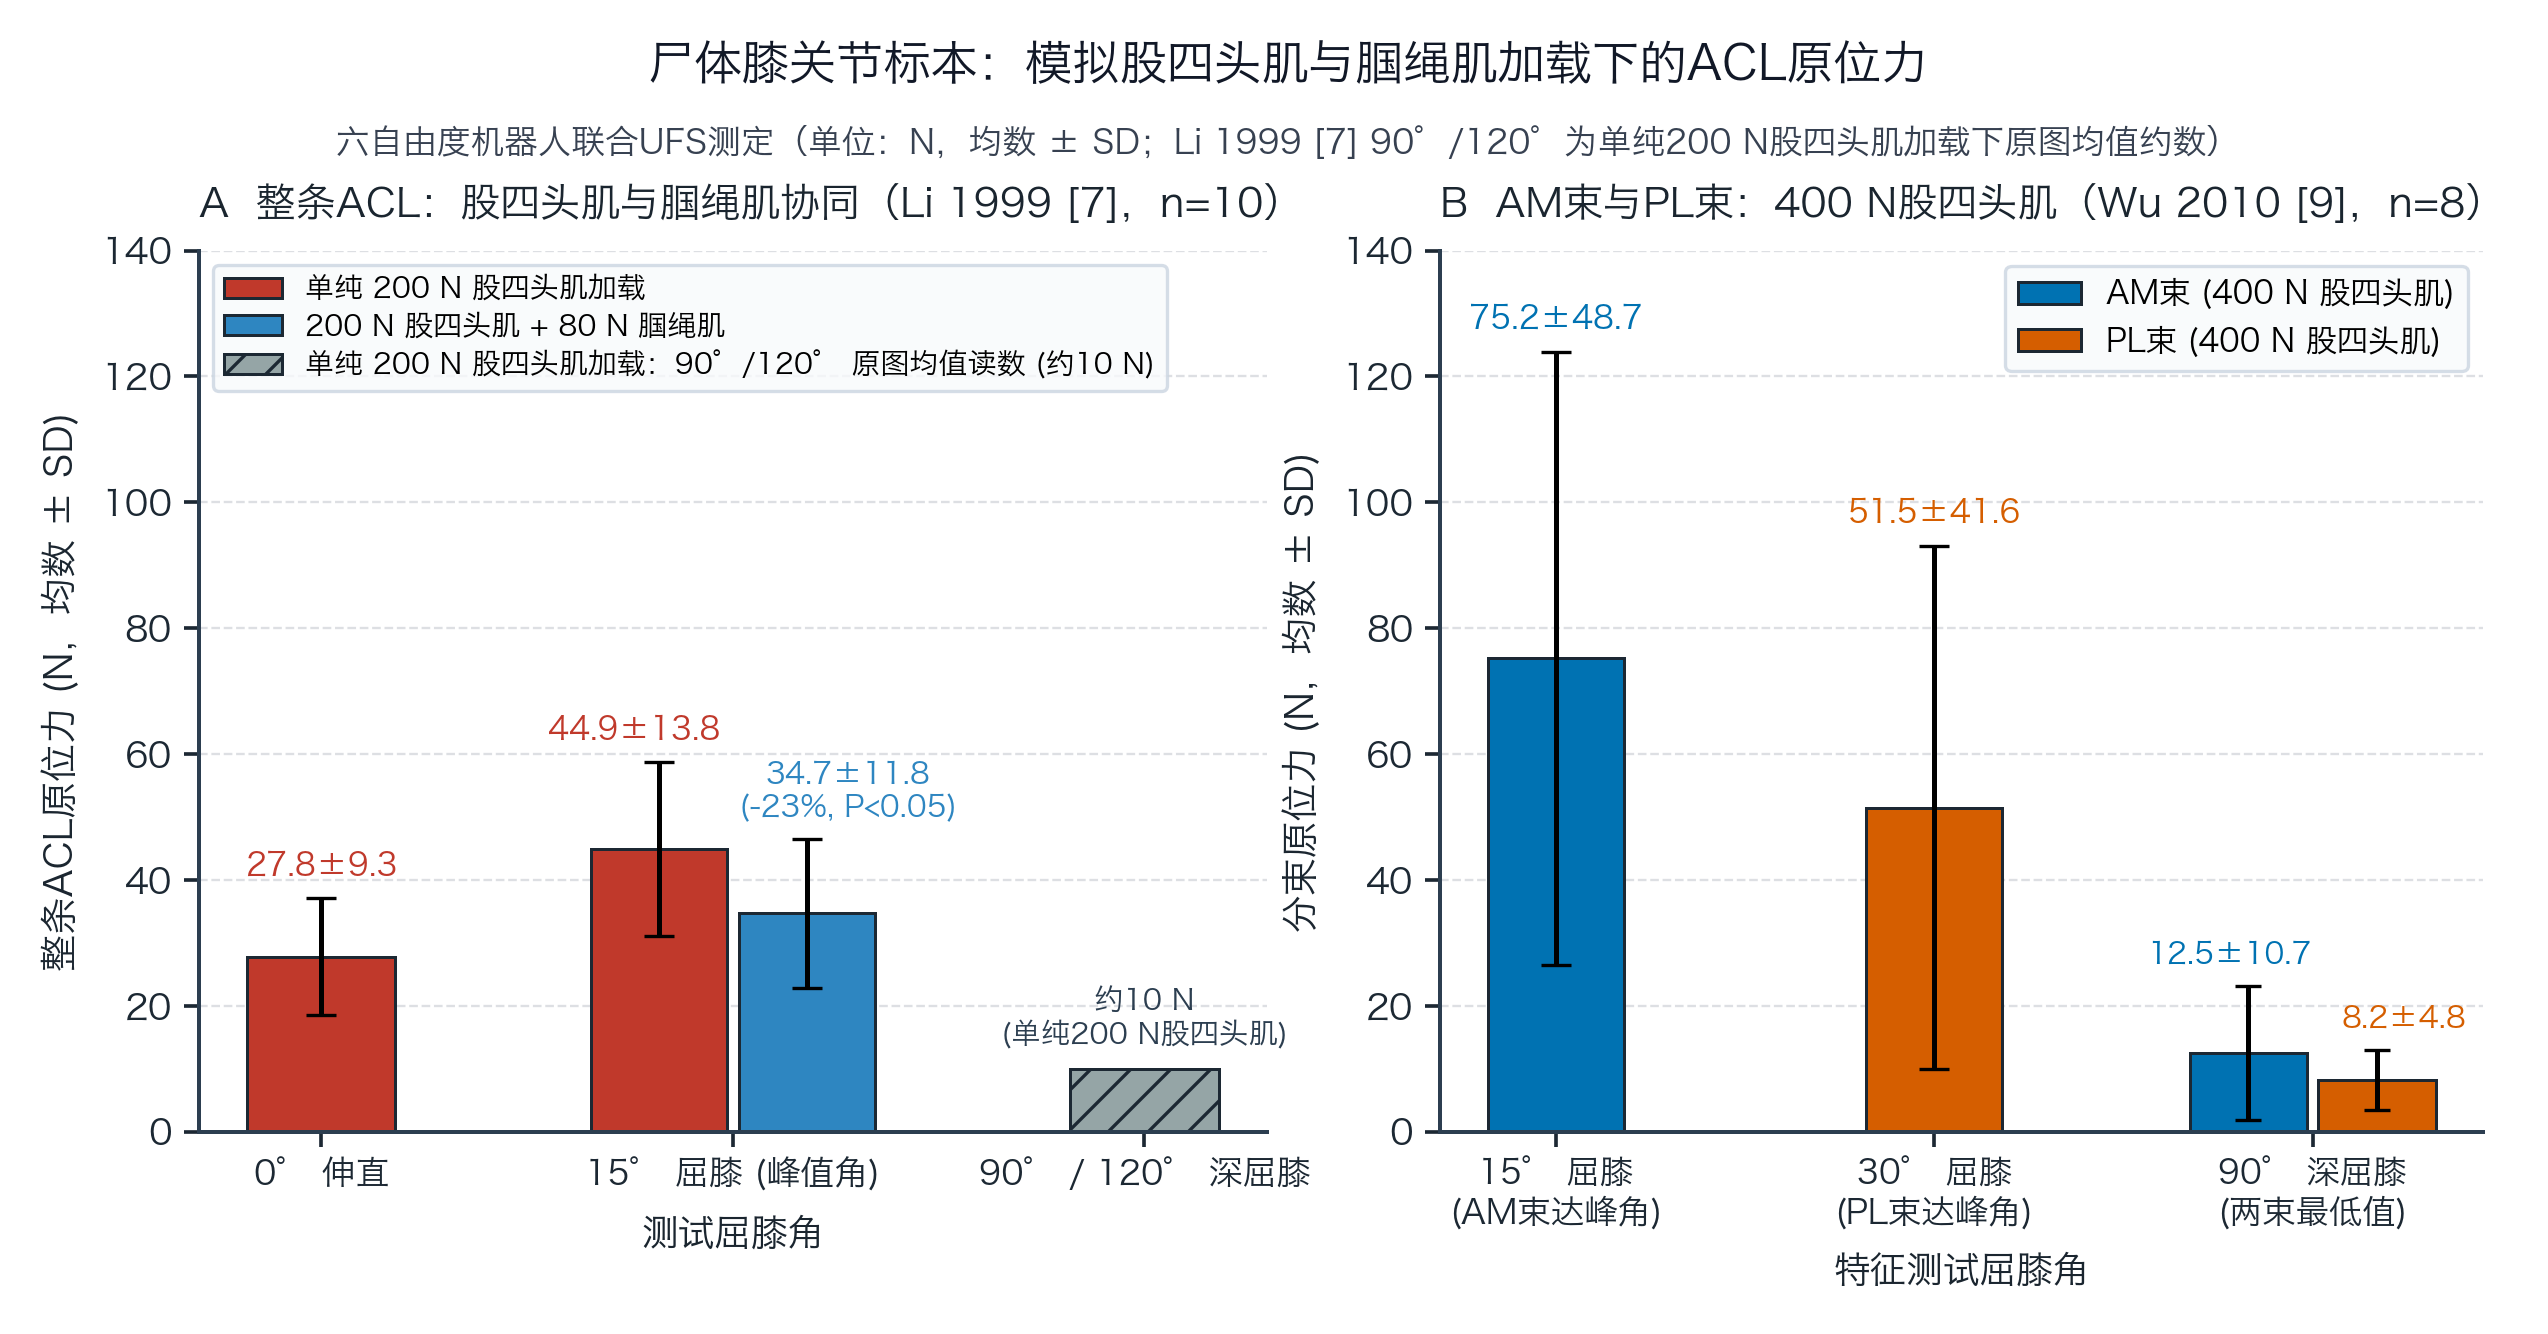
图6 尸体膝关节标本在模拟股四头肌与腘绳肌加载下整条ACL(A)与AM、PL两束(B)的原位力(六自由度机器人联合UFS测定,N,均数 ± SD)。 A为Li等 1999[7](n = 10)施加单纯200 N股四头肌力及叠加80 N腘绳肌协同力时的整条ACL原位力(0°与15°为正文报告均数 ± SD,90°与120°为单纯200 N股四头肌加载下的原图均值近似读数)。B为Wu等 2010[9](n = 8)在400 N股四头肌加载下测得的AM束与PL束三维力向量模(展示AM束15°、PL束30°达峰角与90°深屈膝最低值)。
活体局麻关节镜研究在ACL正常、因半月板或软骨等病变接受关节镜处理的患者中直接测量了主动收缩时的AM束局部应变。Beynnon等1995年研究纳入11名患者(另有7例因重复抽屉试验曲线不一致排除、2例无法植入传感器)[3]。在5°—90°坐位主动屈伸(n = 9,均数 ± SD)中,AM束局部应变在10°屈膝达峰(无配重2.8% ± 0.6%,踝部加45 N配重升至3.8% ± 0.5%);踝部加挂45 N配重显著升高了10°与20°时的应变,对40°—90°无显著影响,并使伸膝过程中的松紧转换角由35°移向45°[3]。在固定角度等长收缩试验中,30 Nm股四头肌等长收缩(n = 5)在15°(4.4% ± 0.6%)与30°(2.0% ± 0.5%)产生显著正应变,而在60°与90°保持未受拉,与同角度肌肉放松对照状态相比无显著变化;单纯−10 Nm腘绳肌等长收缩(n = 8)在15°—90°均处于未受拉状态;当受试者作最大股四头肌与腘绳肌同时等长共收缩(n = 8)时,30°—90°相对放松态无显著变化,但在15°浅屈膝仍产生显著正应变(2.8% ± 0.9%,高于30°的0.4% ± 0.5%)[3]。这表明在15°近伸直位,即便尽最大努力同时收缩腘绳肌,也无法完全抵消股四头肌经前倾髌腱牵拉对AM束造成的拉伸(该文表2跨研究拼合了不同历史样本的数据,且不能仅凭正常ACL应变高低直接断言术后移植物的训练安全性)[3]。
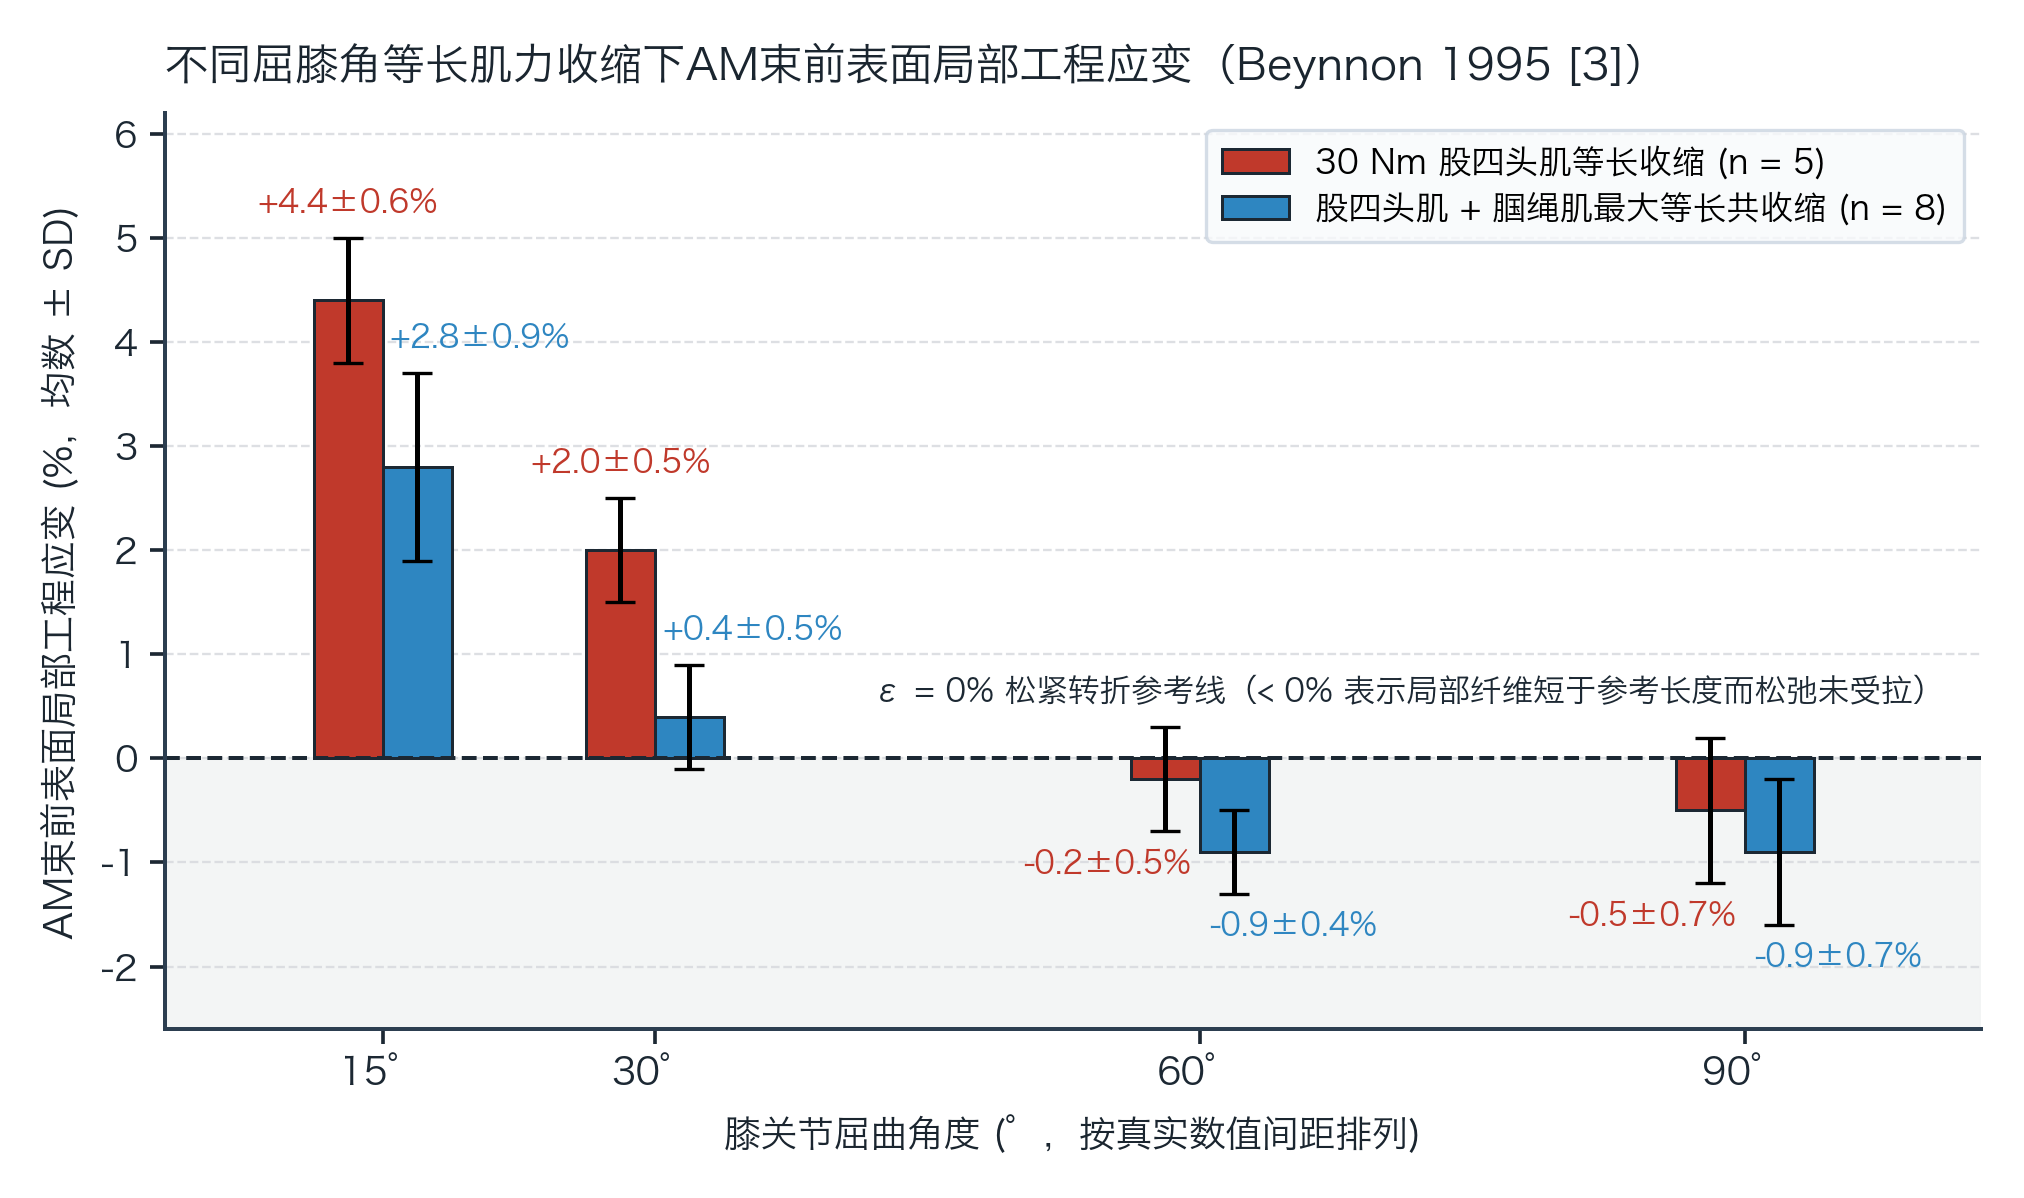
图7 不同屈膝角等长肌力收缩下AM束前表面局部工程应变(Beynnon等 1995[3],%,均数 ± SD)。 活体局麻关节镜下以霍尔效应应变传感器(HEST)测定AM束前表面局部工程应变,对比15°、30°、60°、90°屈膝下30 Nm股四头肌等长收缩(n = 5)与股四头肌、腘绳肌最大努力同时等长共收缩(n = 8)。虚线ε = 0%为30°屈膝标定的松紧转折参考长度l₀;< 0%表示局部浅表纤维短于参考长度而处于松弛未受拉状态,不代表PL束或整条ACL合力。
针对开链与闭链康复动作的争论,Beynnon等1997年研究在8名局麻关节镜患者中对比了坐位主动屈伸(开链)、双腿深蹲(闭链)及附加弹力绳阻力的双腿深蹲[6]。三种动作的平均最大AM束局部应变(均数 ± SD)均出现在10°近伸直位,分别为主动屈伸3.8% ± 1.0%、无绳深蹲3.6% ± 1.3%和弹力绳深蹲4.0% ± 1.7%,随后均随屈膝加深至90°而递减[6]。在10°、20°、70°与90°屈膝时三种动作间未检出显著差异(P ≥ 0.29),但在30°与50°中度屈膝位,两种双腿深蹲的AM束局部应变反而显著高于坐位主动屈伸(P = 0.01,仍低于各自在10°附近的峰值),而深蹲是否附加弹力绳在各角度均无显著差异[6]。该实验未采集肌电图(EMG)或测定关节面压缩力;重建术后的移植物在骨道位置、初始固定刚度与胶原重塑上均不同于原生ACL,8名正常ACL患者未检出峰值差异并不代表两种动作对术后移植物的永久变形或损伤风险相等[6]。
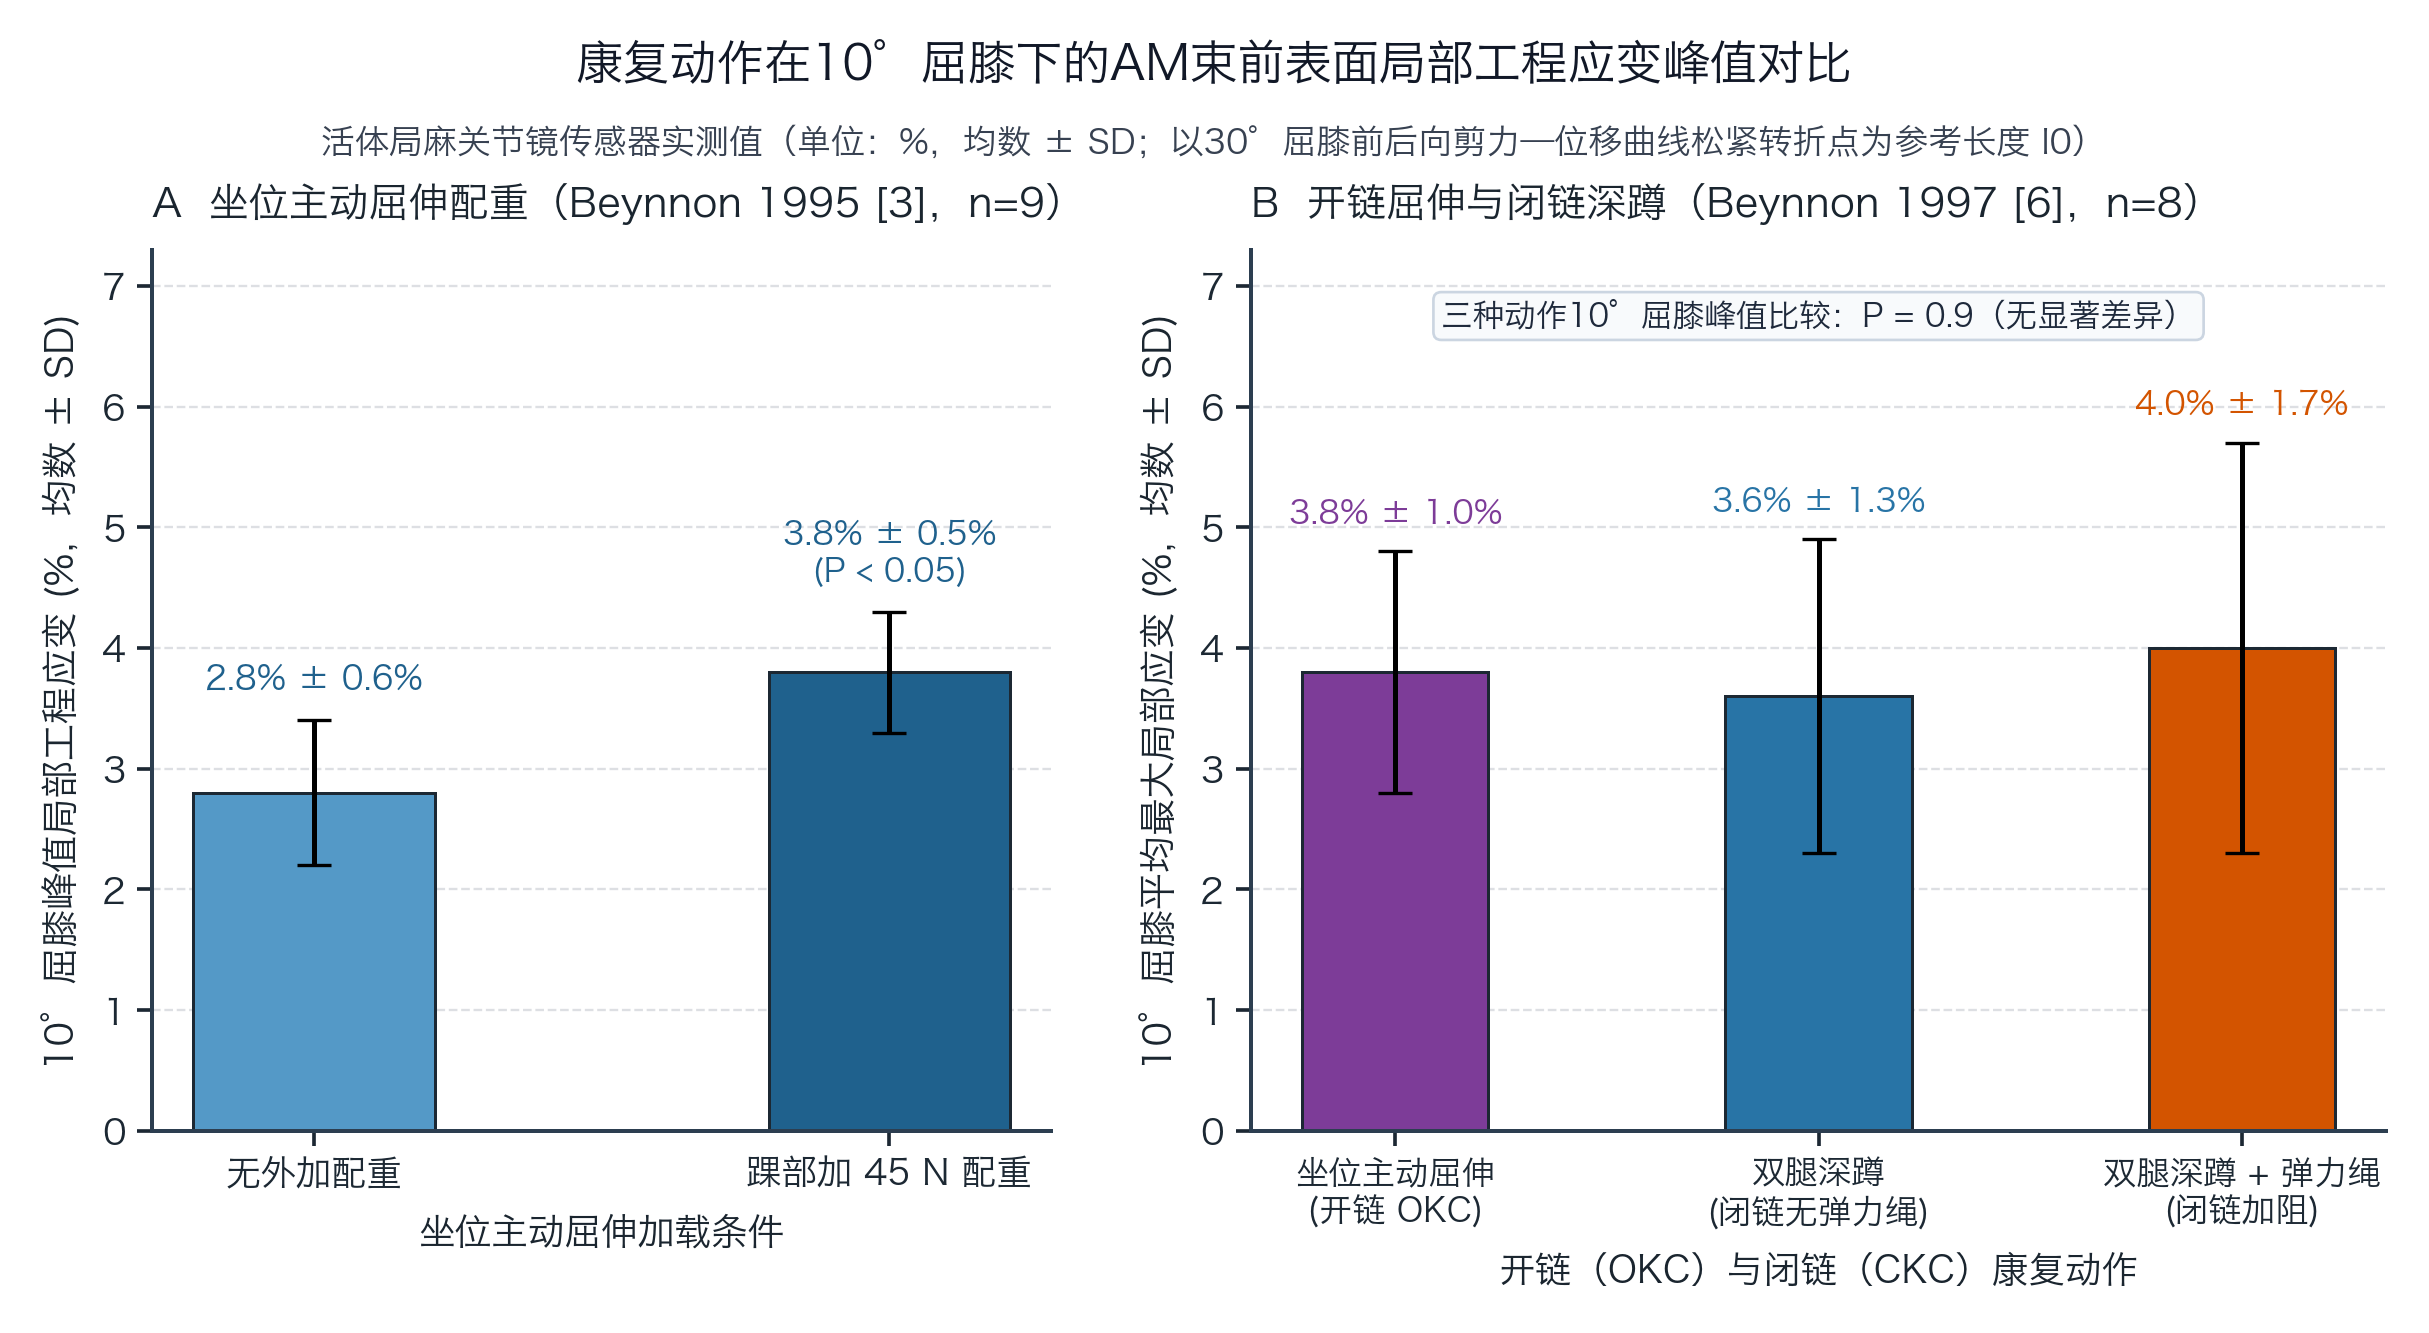
图8 康复动作在10°屈膝下的AM束前表面局部工程应变峰值对比(活体局麻关节镜局部应变传感器测定,%,均数 ± SD)。 两项实验均以30°屈膝标定松紧转折参考长度l₀:A为Beynnon等 1995[3](n = 9,HEST传感器)在坐位主动屈伸中对比无外加配重与踝部加45 N配重的10°峰值局部应变;B为Beynnon等 1997[6](n = 8,DVRT传感器)对比坐位主动屈伸(开链)、双腿深蹲(闭链无弹力绳)与附加弹力绳双腿深蹲(闭链加阻)在10°屈膝的平均最大局部应变。
在关节承重条件下,Fleming等2001年研究(djOrthopaedics资助)在11名局麻关节镜患者中固定20°屈膝,利用受载架沿踝至髋连线施加40%体重轴向负荷;由于大腿未固定,受试者必须主动收缩下肢肌肉以维持20°屈膝,实测的是“40%体重轴向负荷加主动肌肉维持”的复合状态[10]。结果(均数 ± 95%置信区间半宽)显示,无外加剪力或力矩时,由非承重切换至受载架承重使20°屈膝下的AM束局部应变从−2.0% ± 1.78%显著升至2.1% ± 1.78%(P < 0.01)[10]。叠加前后向剪力时,承重状态下的AM束局部应变在全部后向剪力及<40 N前向剪力区间均显著高于非承重(P < 0.01),在40—130 N较高前向剪力下两者趋于一致(130 N时P = 0.74)[10]。叠加轴向旋转力矩时,−9 Nm内旋下承重(2.4% ± 1.97%)与非承重(2.4% ± 1.72%)无显著差异(P = 0.82),而在−2 Nm低内旋至+9 Nm外旋范围内承重状态的应变均显著更高(P = 0.02)[10]。叠加±10 Nm内外翻力矩时,非承重下AM束全程未受拉,承重状态下则全程显著受拉(P < 0.01)[10]。这说明20°浅屈膝下40%体重轴向负荷伴随主动肌肉维持时AM束局部应变明显升高;作者提出胫骨平台后倾在关节面压缩下产生前向分力与伸膝肌主动收缩两项可能原因,但实验未分别操纵后倾角、轴向压缩与肌力,尚不能定量分离各自的贡献[10]。
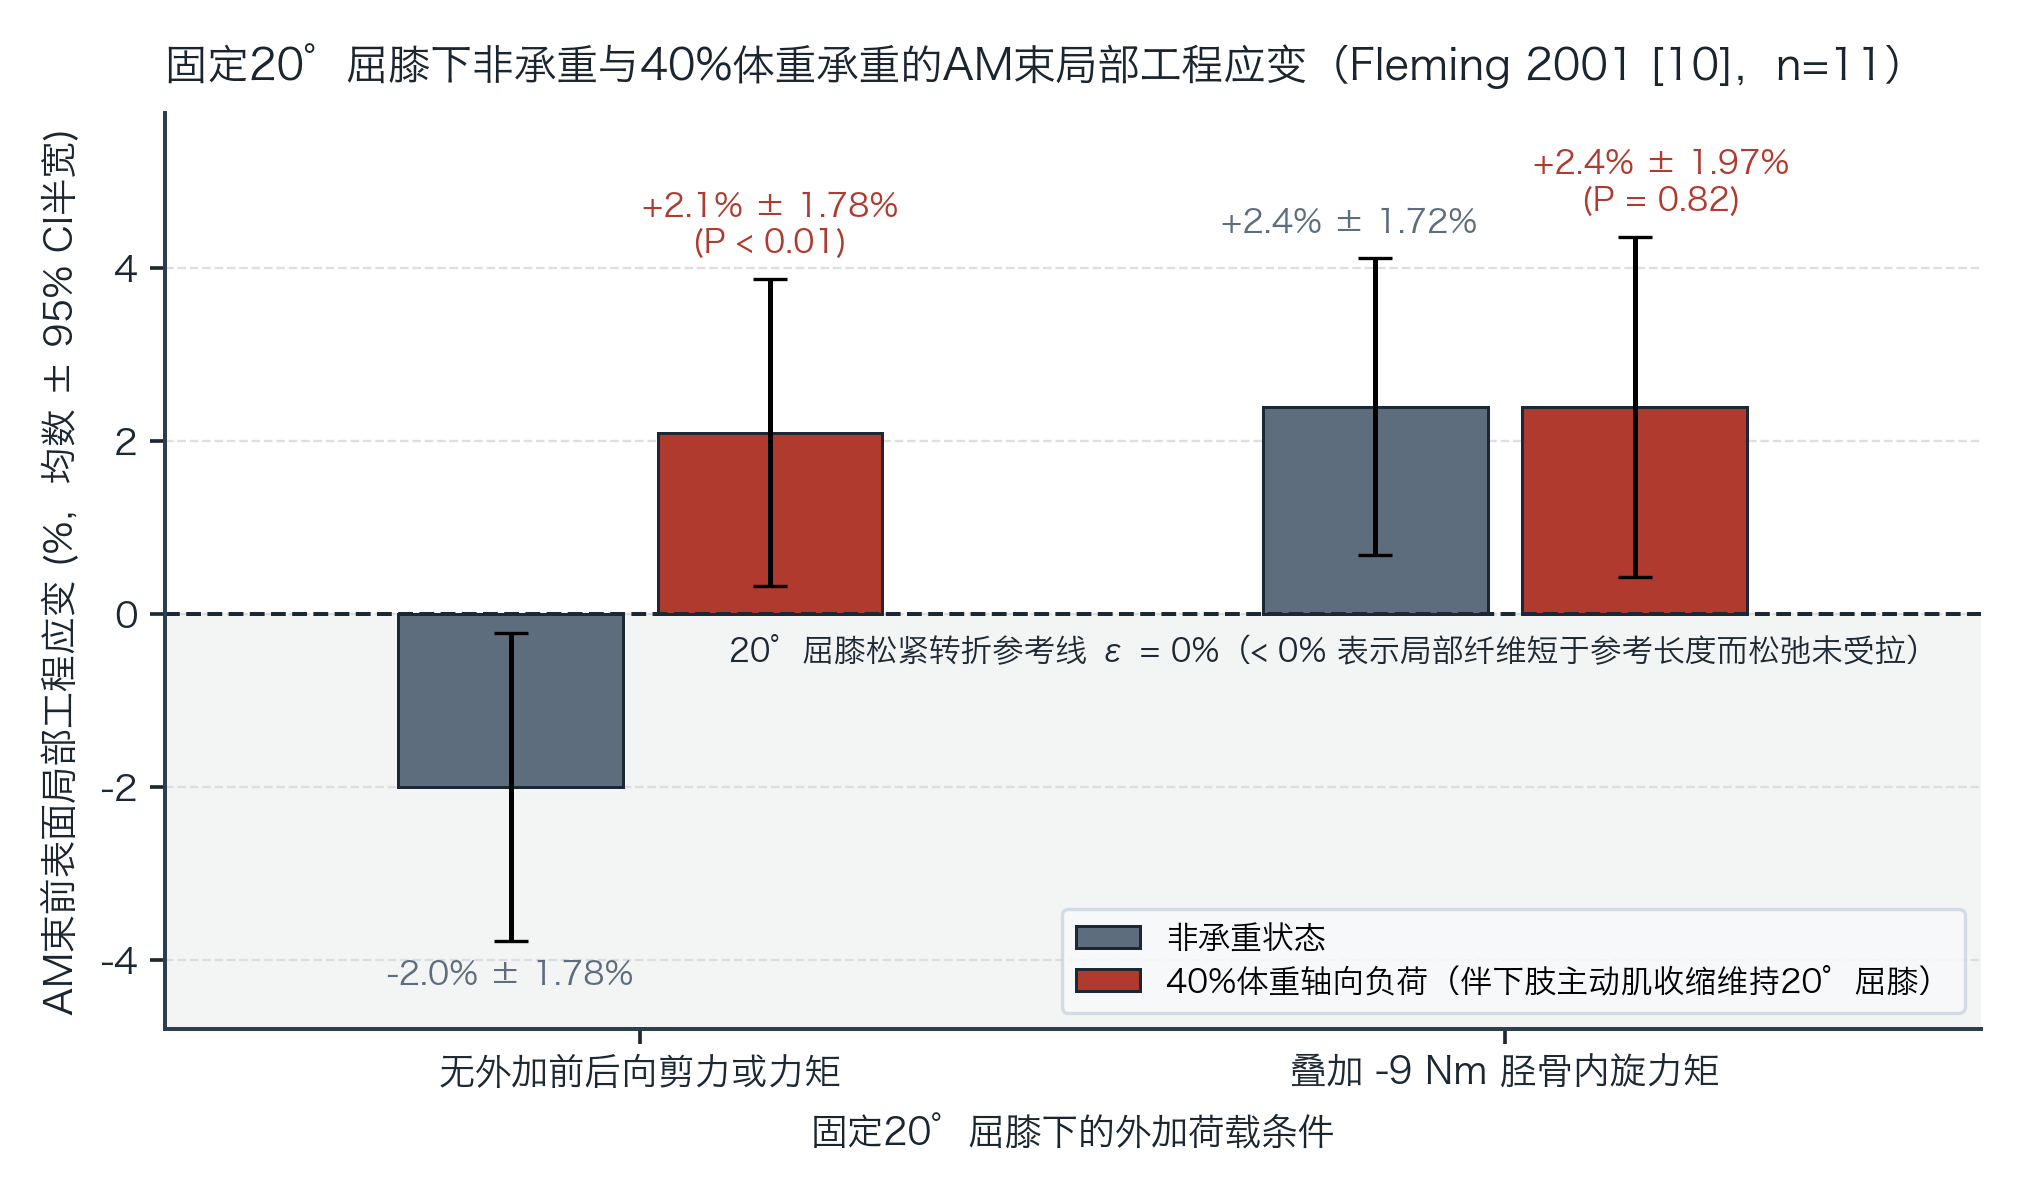
图9 固定20°屈膝下非承重与40%体重承重的AM束前表面局部工程应变(Fleming等 2001[10],n = 11,%,均数 ± 95%置信区间半宽)。 活体局麻关节镜下以DVRT传感器测定局部应变,对比无外加剪力或力矩与叠加−9 Nm胫骨内旋力矩两类条件下的非承重及40%体重轴向承重状态(受试者需主动收缩下肢肌肉维持20°屈膝)。虚线ε = 0%为20°屈膝标定的松紧转折参考长度l₀;< 0%表示局部浅表纤维短于参考长度而处于松弛未受拉状态,不代表PL束或整条ACL合力。
四、步行、跑步与跳跃着地中的活体附着区相对伸长
无创活体三维动态研究揭示了日常步态与跑跳着地中ACL附着区中心距离相对静态扫描姿势的变化规律。Nagai等采用CT骨模型匹配双平面X线透视,测量了10名健康受试者右膝在自选速度步行(1.4 ± 0.2 m/s)和慢跑(2.6 ± 0.4 m/s)时的两束相对伸长,以仰卧完全伸膝MRI上按附着区轴线中点50/50几何分割的中心距离为l₀[14]。结果(均数 ± 95% CI)显示,两项活动的相对伸长峰值均在支撑相:步行时AM束峰值为5.0% ± 1.7%(屈膝11.3° ± 12.3°),PL束峰值为3.4% ± 2.3%(屈膝2.6° ± 2.9°,两束P = 0.157);慢跑时AM束峰值升至6.7% ± 2.1%(屈膝29.5° ± 6.4°,高于步行P = 0.043),PL束峰值降至1.1% ± 2.1%(屈膝26.4° ± 7.5°,低于步行P = 0.014;慢跑两束差异P < 0.001)[14]。作者指出慢跑支撑相屈膝角较大可能部分解释PL束相对伸长的减小,同时承认因缺乏各束松紧转折长度,相对距离百分比不能确定两束的绝对伸长或实际分担的力比例[14]。原文图4与图5显示同一屈膝角在支撑相与摆动相对应不同束长;不过,其表1与表2的多元逐步回归(R² = 0.925—0.986)直接拟合组平均插值时间序列点且未报告时间自相关处理,不能作为个体独立预测依据,且表1步行AM束摆动期“外侧—内侧胫骨位移”行的B = −1.403与β = +0.977正负号矛盾,附件图S-1与S-2改变分割比例(30/70至70/30)时摆动期曲线幅度亦明显变化[14]。
Englander等2020年研究利用MRI骨模型与双平面X线透视观察10名健康受试者1 m/s跑台步行(以仰卧MRI平均屈膝8° ± 2°下的附着区中心距离为l₀),发现整条ACL相对伸长(均数 ± SD)在步态周期中呈双峰:中支撑期局部峰值为5% ± 4%(屈膝−2° ± 8°),足跟触地前后的全周期最大峰值为12% ± 5%(屈膝−4° ± 10°)[15]。在每2%周期的组平均时间序列上(未报告时间自相关处理),Spearman相关显示屈膝角与整条ACL(ρ = −0.87)、AM束(ρ = −0.86)及PL束(ρ = −0.82)相对伸长均呈强负相关,两束之间呈强正相关(ρ = 0.90,均P < 0.001)[15]。针对该文平地步行出现“12%峰值应变”的报告,Bates等致信指出仰卧MRI并未测定韧带由松转紧的零应变长度,不能将12%当作真实组织拉伸应变[16];但Bates等在信中不仅把原文的12%误引为12.5%,还直接加上尸体冲击试验约3%的应变增量得出15.5%并与尸体ACL拉伸试验的断裂应变(15.0% ± 1.4%)并列,混淆了不同参考基准的测量量[16]。Englander等回复澄清原文从未报告12.5%,并指出对单名受试者以固定正数l₀作归一化不会改变其自身最大长度出现的时刻与对应姿势[17];但回复声称改变参考长度“不会改变任何研究结论”则过于绝对——未测真实零载荷长度时,受试者之间初始松弛或预紧程度的差异仍会改变各人的百分比量级、组均值及跨受试者汇总关系[15,16,17]。
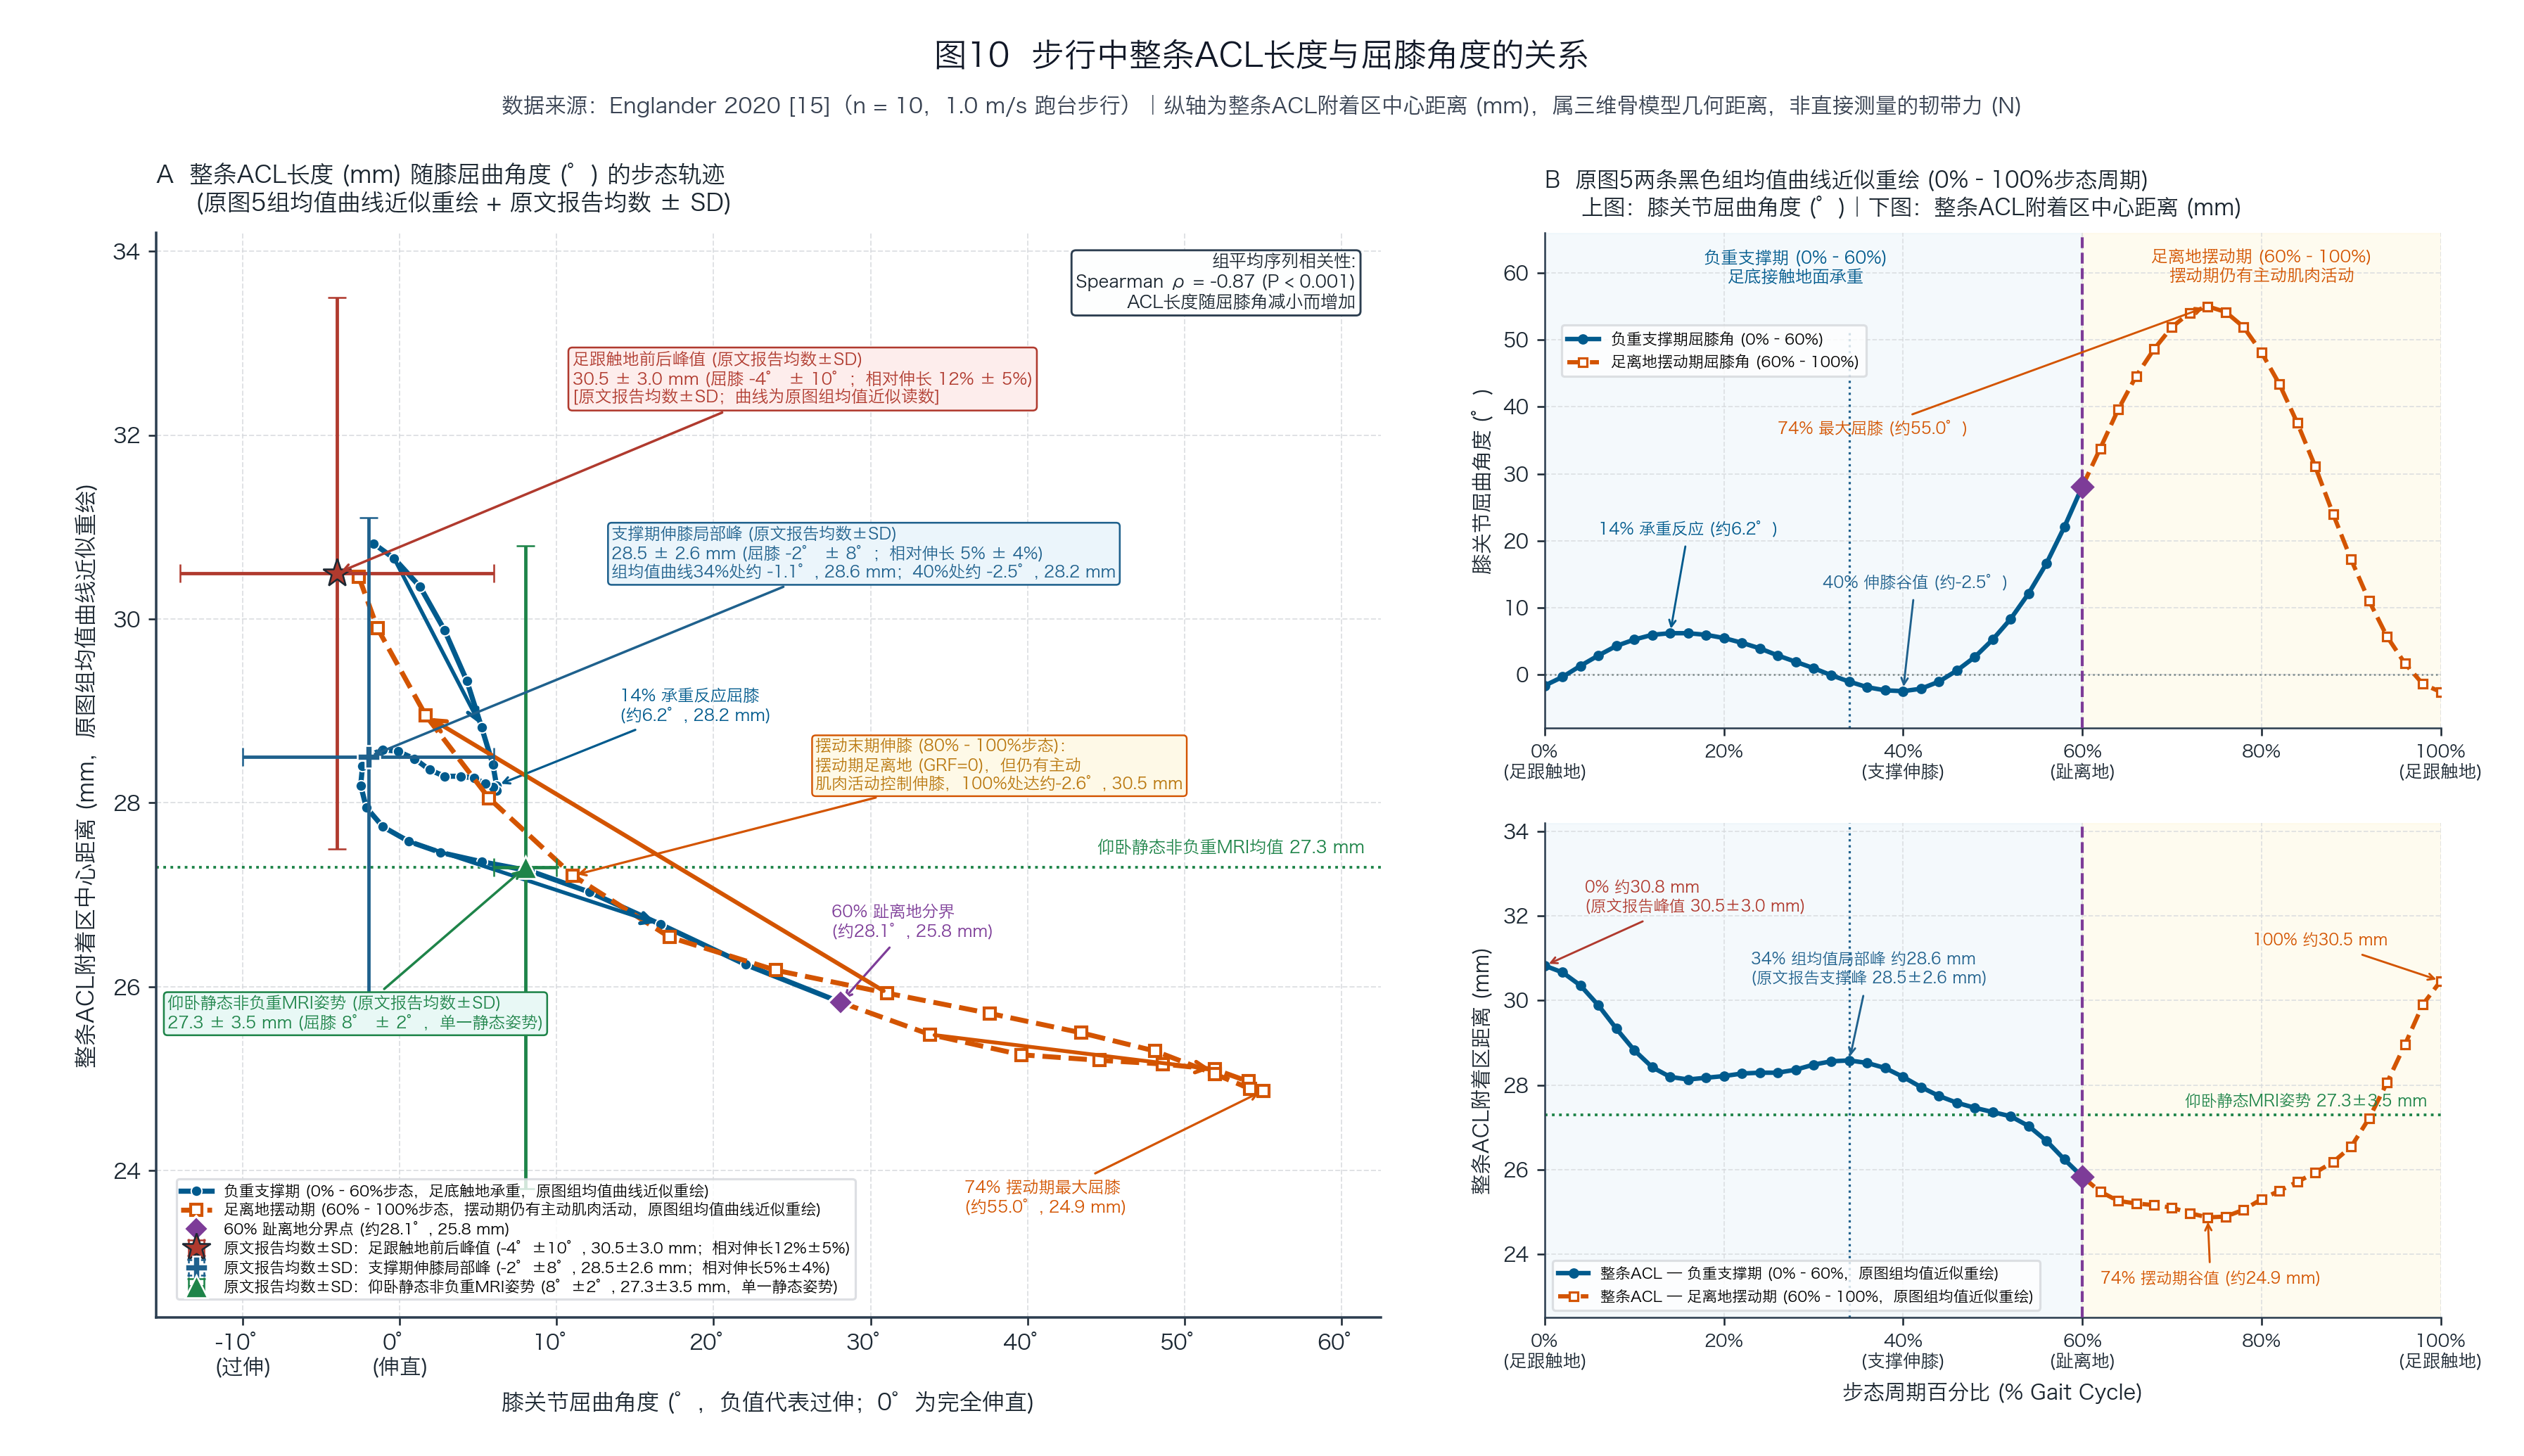
图10 步行中整条ACL长度与屈膝角度的关系(Englander等 2020[15],n=10,1.0 m/s步行)。 纵轴为双平面X线透视配准三维MRI骨模型测得的整条ACL附着区中心距离(mm),非直接测量的韧带力(N)。A为ACL长度随屈膝角变化的步态轨迹,B为0%—100%步态周期屈膝角(上)与ACL长度(下)配对轨迹。曲线为原图5组均值近似读数,区分0%—60%负重支撑期与60%—100%足离地摆动期(摆动期仍有主动肌肉活动);带误差线符号为原文报告均数±SD(触地前后峰30.5±3.0 mm、−4°±10°;支撑伸膝峰28.5±2.6 mm、−2°±8°;单一仰卧静态MRI姿势27.3±3.5 mm、8°±2°)。
在跳跃任务中,Taylor等结合皮肤标记动作捕捉、静态双平面透视与仰卧MRI(平均屈膝16.6° ± 6.2°)测量了8名健康男性从47 cm高台双腿跳下着地并立即全力垂直起跳的过程[11]。结果(均数 ± 95% CI)显示,受试者在腾空期由48.9° ± 14.7°经302 ± 51 ms主动伸膝准备着地,于初始触地前55 ± 14 ms、接近最小屈膝角(11.2° ± 3.5°)时达到整条ACL相对伸长峰值12% ± 7%,而触地后的局部峰值较触地前最大伸长低5%[11]。不过,该研究仅在4名受试者0°—45°准静态弓步中验证了皮肤标记配准精度(R² = 0.92,均方根误差0.5 mm),未能直接验证高速着地冲击阶段的软组织伪影,且未采集EMG,讨论中将12%相对伸长与尸体ACL拉伸试验的断裂应变(15%—19%)直接比较同样混淆了不同零点[11]。
Englander等2021年研究采用双平面X线透视直接追踪8名健康男性原地单腿垂直跳时的骨骼与髌腱运动:ACL相对伸长组平均曲线的局部峰值出现在40%跳跃周期(初始触地前61 ± 42 ms的腾空伸膝期)附近,该时点附近屈膝角为−2° ± 8°、髌腱矢状面夹角升至18° ± 6°,ACL相对伸长达7% ± 4%,髌腱相对伸长同步升至7% ± 3%,且触地后至最大地面反作用力期间两条组平均曲线再次上升[18]。在14个组平均时间点的二变量线性回归(原文图6,未报告时间自相关处理)中,屈膝角与髌腱矢状面夹角呈强负相关(r² = 0.95,P = 3.4 × 10⁻⁹),ACL相对伸长与髌腱相对伸长呈正相关(r² = 0.65,P = 4.8 × 10⁻⁴),支持近伸直位股四头肌通过拉紧前倾的髌腱拉长ACL(尽管未直接测肌电或肌力)[18]。但在该文表1(p6)采用稳健方差估计的多变量回归中,“屈膝角”行的回归系数Estimate = −0.2、标准误SE = 0.2与检验统计量t = −3.4(P = 0.0008)数学上互不相容(考虑一位小数四舍五入时∣Estimate / SE∣最大仅约1.67),该行参数估计不能作为定量依据[18]。
在冠状面姿势与骨形态关联方面,Foody等2023年[19]与2024年[20]两篇论文均报告17名健康受试者完成原地单腿垂直跳的双平面透视数据;两文人口学与侧别分布完全相同且2024年招募方法直接引用2023年研究,极可能共用同一受试者队列,不能视为独立人群的重复验证。2023年研究将动态关节角表示为相对各人仰卧MRI姿势的变化量,观察到组平均ACL相对伸长在起跳附近(相对屈膝−6.5° ± 8.6°)和腾空中段(相对屈膝−2.4° ± 12.3°)出现局部峰值;在1%插值组平均时间序列上(未报告时间自相关处理),Spearman相关显示屈膝角与ACL相对伸长呈负相关(ρ = −0.3,P = 0.002),而内外翻角与ACL相对伸长未检出相关(ρ = −0.01,P = 0.9)[19]。该任务中受试者全程平均内外翻位置为−0.5° ± 0.3°、平均冠状面活动幅度仅0.8° ± 0.3°(峰时跨受试者SD为1.3°—1.4°)且无外翻扰动,较小的冠状面运动范围限制了据此对大幅外翻或外翻力矩致伤条件作出判断[19]。
Foody等2024年研究由两名测量者在MRI上测量内侧胫骨后倾角(3.3° ± 2.9°)、外侧胫骨后倾角(4.1° ± 5.1°)和内侧平台深度(2.1 ± 0.6 mm;测量者间ICC分别为0.59、0.85与0.94),发现17人跳跃全程的最大ACL相对伸长与三项骨形态指标均无显著相关(全部P > 0.46)[20]。这一阴性结果不能排除较小的形态关联或临床损伤风险:该文样本量估算分为两项,17人样本是依据既往步行峰值相对伸长标准差5%(α = 0.05、80%功效)估算检出≥3.6%的非零ACL峰值相对伸长(即峰值相对伸长与0的差异),而骨形态相关分析是按强相关(r = 0.76,至少11人)估算样本量;同时,因变量取跳跃全程(常出现在腾空期)的最大相对伸长,未单独隔离着地后轴向压缩阶段,实验本身也未观察损伤结局[20]。此外,作者在表3将各人l₀乘以N(1, 0.05²)随机数模拟100次(三项指标分别出现4次、2次、1次P < 0.05),并在正文(p6)将α = 0.05解释为100次模拟中“最多5次”显著可归因于随机误差;这一解释混淆了独立抽样下的长期期望假阳性率与同一批样本重复加噪的次数上限,且均值为1的随机比例扰动无法检验仰卧MRI参考长度的系统性偏差[20]。
聚焦于触地后冲击制动阶段,Kamada等利用CT骨模型与双平面X线透视测量了19名健康大学运动员(双侧38膝)在5.0 m/s快跑和20 cm高台单腿跳下着地时的两束相对伸长(资深作者V. Musahl披露Newclip与Smith & Nephew咨询费、Ostesys股权及匹兹堡大学专利US 9,949,684)[21]。该文的动态分析限定于触地后区间,未报告腾空阶段结果,其中快跑分析支撑期前60%,跳下着地分析初始触地(0%)至最大屈膝(100%)阶段;研究以仰卧CT姿势(实测平均屈膝6.5° ± 3.5°)下的附着区中点50/50几何分割中心距离为l₀,并将动态屈膝角减去各膝CT屈膝角归零[21]。广义估计方程结果(均数[95% CI],表2)显示,快跑支撑期前60%内AM束峰值相对伸长为4.3%(1.9%—6.7%,相对CT屈膝29°[27°—31°]),显著高于PL束峰值1.7%(−1.3%—4.7%,相对CT屈膝27°[25°—30°],P < 0.001),与Nagai等慢跑中AM束相对伸长更大的观察一致[14,21]。在20 cm单腿跳下着地阶段,PL束在触地后最初20%分析期内先达峰值7.6%(5.2%—10.1%,相对CT屈膝8°[5°—12°]、胫骨前移3.1 mm、内旋8.2°),AM束约在40%分析期达峰值6.7%(4.7%—8.7%,相对CT屈膝14°[11°—18°]、前移4.0 mm、内旋10.9°);两束峰值相对伸长无显著差异(P = 0.17),但达峰时运动学差异均P < 0.001,显示触地制动早期两束先后达到较大附着区相对距离[21]。
但Kamada等原文存在四处明显的报告与推论问题[21]。结果正文(p6)将跳下着地AM束峰值误写为“7.6%(95% CI, 4.7%—8.7%)”,把表2中PL束的点估计值与AM束的置信区间混拼在一起;讨论(p7)又称快跑时PL束从未超过CT长度、AM束最大伸长“约2%”,与表2(1.7%与4.3%)及图3不符[21]。方法(p3)说明38膝每侧采集分析3次试验(应为114次),结果(p5)却报告57次快跑与114次跳下着地,未解释快跑试验减半的原因[21]。在临床推论上,讨论(p8)根据跳下着地达峰角度建议ACL重建术中在约14°屈膝固定AM束、在略小的屈膝角固定PL束,且两束均在胫骨轻度内旋位固定;这一建议既无移植物力学或临床随访依据,又忽视了表2的14°与8°是减去各人仰卧CT屈膝角(平均6.5° ± 3.5°)后的相对角度,不能直接当作手术台上的绝对屈膝角[21]。
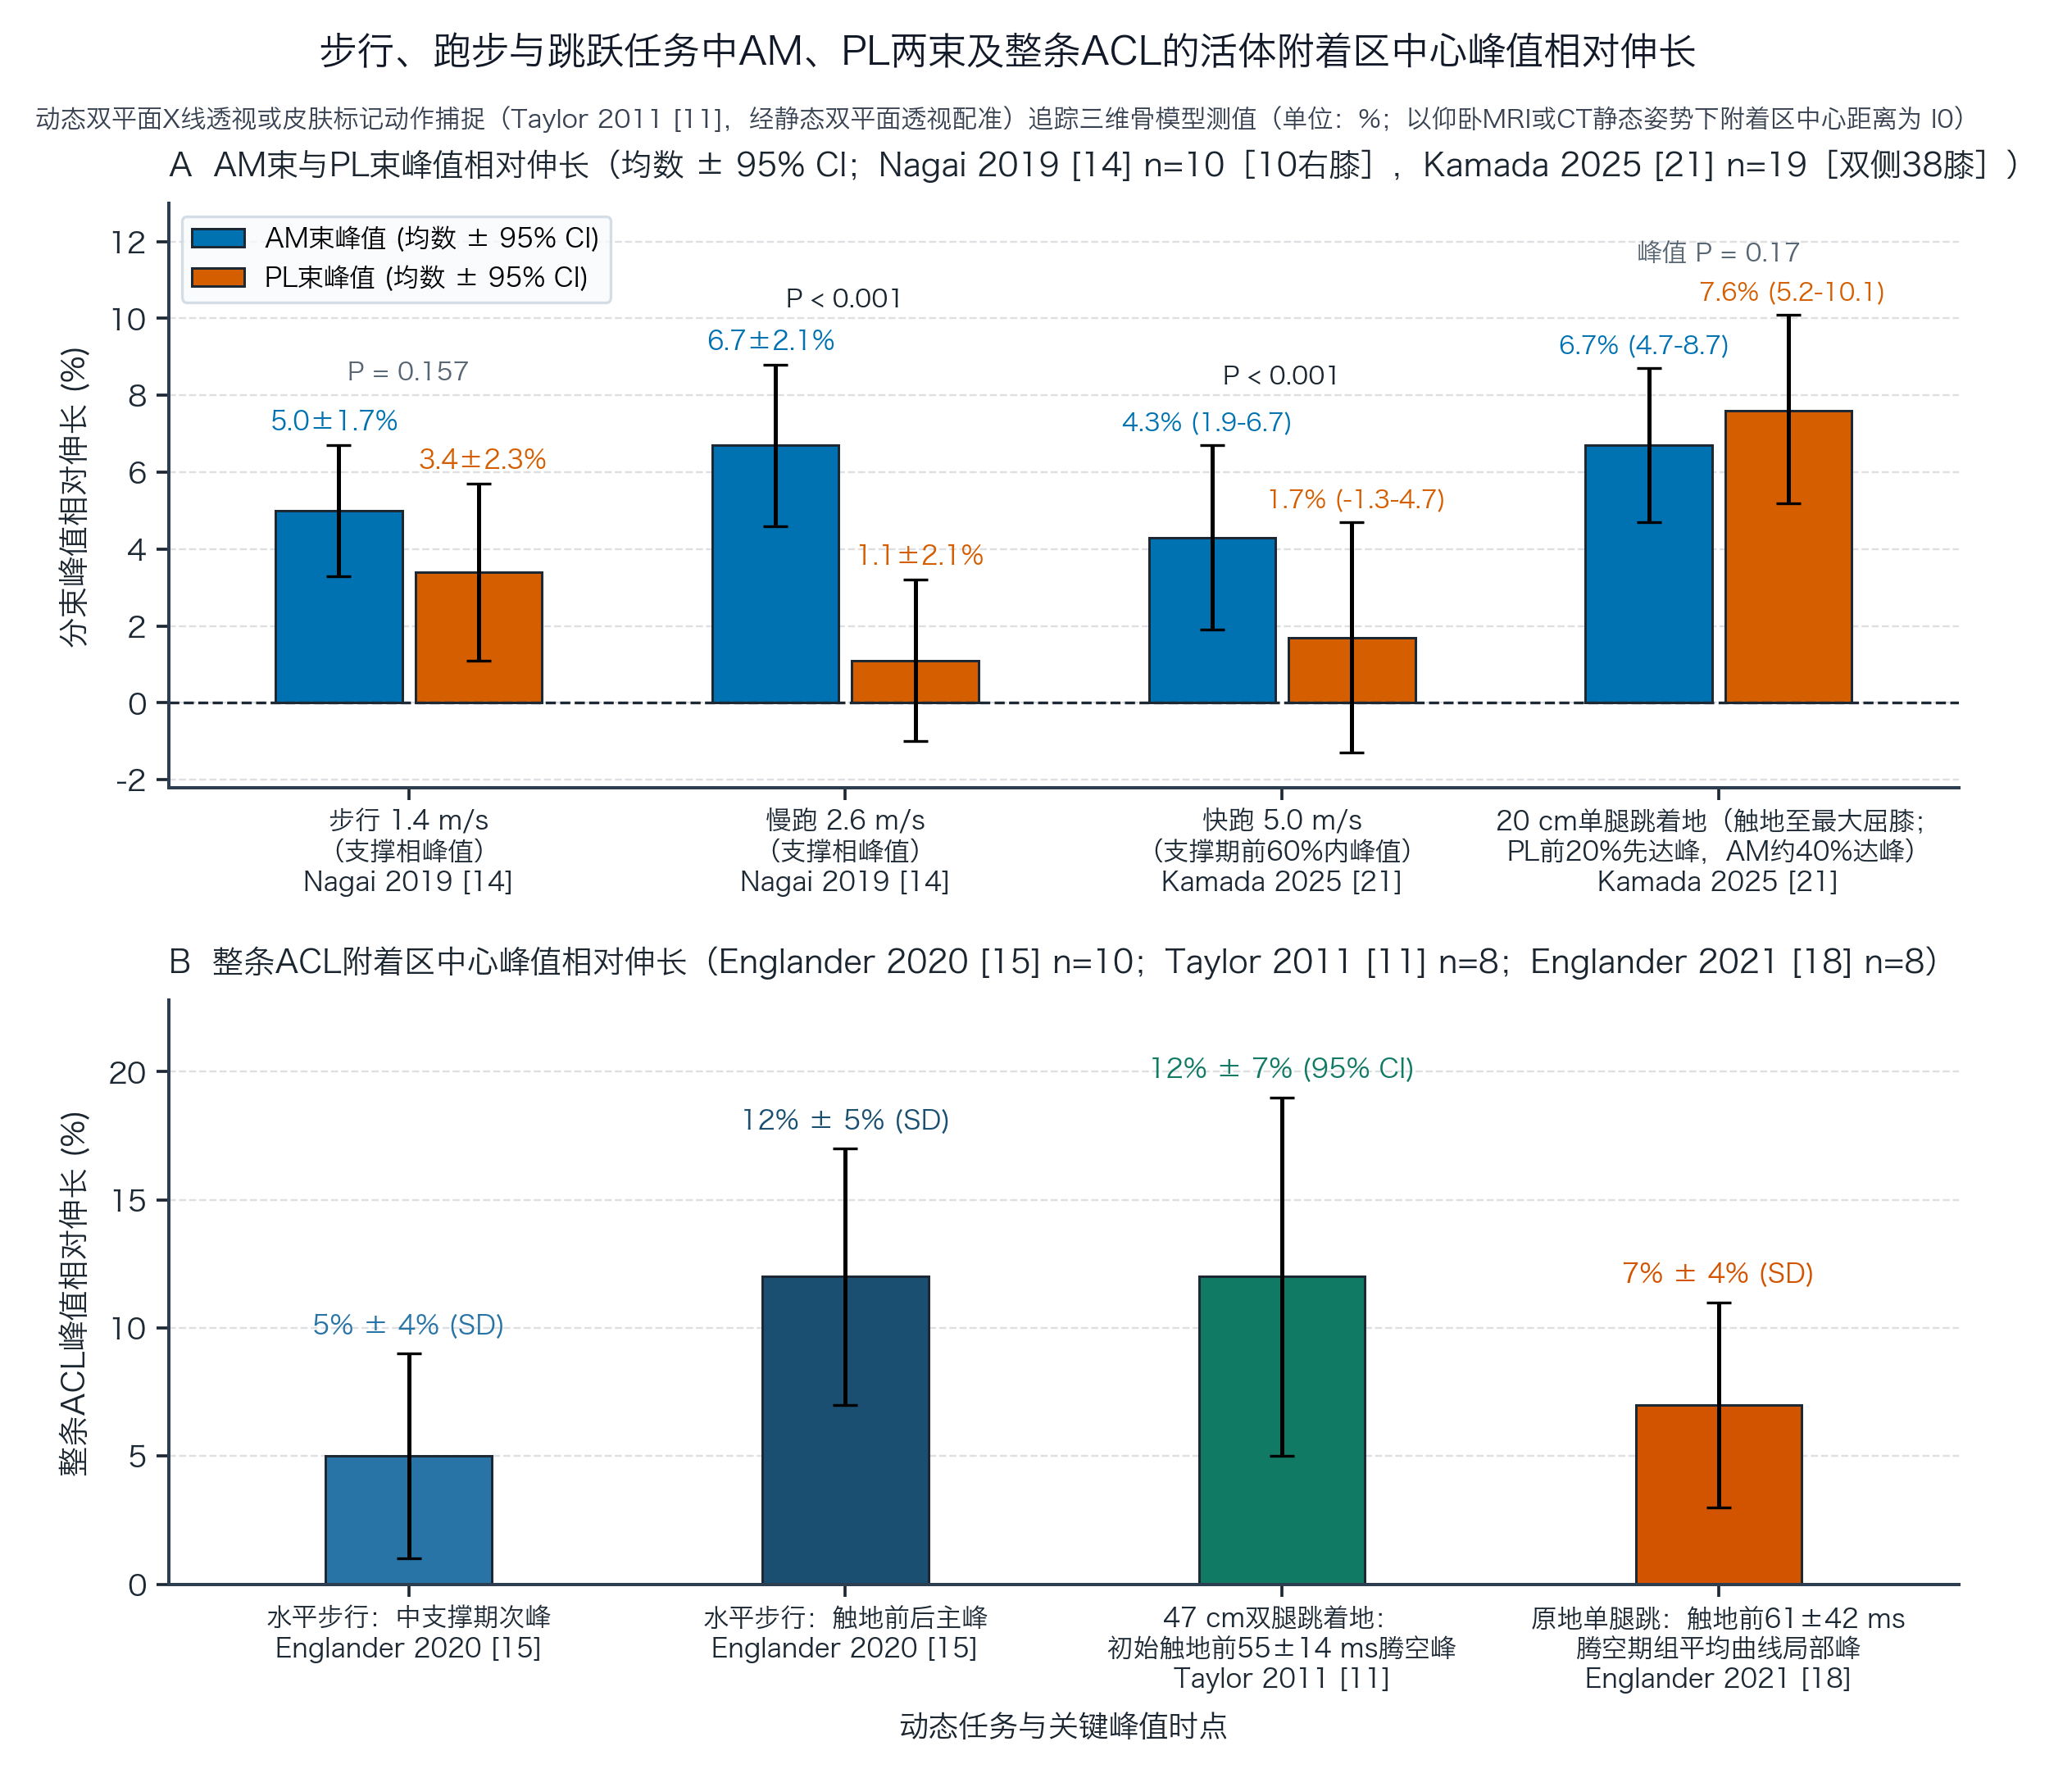
图11 步行、跑步与跳跃任务中AM、PL两束(A)及整条ACL(B)的活体附着区中心峰值相对伸长(%)。 由三维CT或MRI骨模型配准双平面X线透视(Taylor等 2011[11]为动作捕捉经静态双平面透视校准)测定附着区中心距离相对静态仰卧扫描姿势(l₀)的百分比变化(不同于关节内局部工程应变或尸体膝关节标本中的直接测力)。A为分束峰值相对伸长(均数 ± 95% CI):Nagai等 2019[14](n = 10,仰卧完全伸膝MRI为l₀)步行与慢跑支撑相峰值,以及Kamada等 2025[21](n = 19,双侧38膝,仰卧屈膝6.5° ± 3.5° CT为l₀)5.0 m/s快跑支撑期前60%与20 cm单腿跳下着地制动期峰值。B为整条ACL峰值相对伸长:Englander等 2020[15](n = 10,均数 ± SD,仰卧8° ± 2° MRI为l₀)水平步行双峰、Taylor等 2011[11](n = 8,均数 ± 95% CI,仰卧16.6° ± 6.2° MRI为l₀)47 cm双腿跳着地腾空峰,以及Englander等 2021[18](n = 8,均数 ± SD)原地单腿跳腾空期组平均曲线局部峰。
参考文献
- [1]
Amis AA, Dawkins GP. Functional anatomy of the anterior cruciate ligament. Fibre bundle actions related to ligament replacements and injuries. J Bone Joint Surg Br. 1991;73(2):260-267. doi:10.1302/0301-620x.73b2.2005151 PMID:2005151
- [2]
Fleming BC, Beynnon BD, Tohyama H, Johnson RJ, Nichols CE, Renström P, Pope MH. Determination of a zero strain reference for the anteromedial band of the anterior cruciate ligament. J Orthop Res. 1994;12(6):789-795. doi:10.1002/jor.1100120606 PMID:7983554
- [3]
Beynnon BD, Fleming BC, Johnson RJ, Nichols CE, Renström PA, Pope MH. Anterior cruciate ligament strain behavior during rehabilitation exercises in vivo. Am J Sports Med. 1995;23(1):24-34. doi:10.1177/036354659502300105 PMID:7726347
- [4]
Markolf KL, Burchfield DM, Shapiro MM, Shepard MF, Finerman GA, Slauterbeck JL. Combined knee loading states that generate high anterior cruciate ligament forces. J Orthop Res. 1995;13(6):930-935. doi:10.1002/jor.1100130618 PMID:8544031
- [5]
Sakane M, Fox RJ, Woo SL, Livesay GA, Li G, Fu FH. In situ forces in the anterior cruciate ligament and its bundles in response to anterior tibial loads. J Orthop Res. 1997;15(2):285-293. doi:10.1002/jor.1100150219 PMID:9167633
- [6]
Beynnon BD, Johnson RJ, Fleming BC, Stankewich CJ, Renström PA, Nichols CE. The strain behavior of the anterior cruciate ligament during squatting and active flexion-extension. A comparison of an open and a closed kinetic chain exercise. Am J Sports Med. 1997;25(6):823-829. doi:10.1177/036354659702500616 PMID:9397272
- [7]
Li G, Rudy TW, Sakane M, Kanamori A, Ma CB, Woo SL. The importance of quadriceps and hamstring muscle loading on knee kinematics and in-situ forces in the ACL. J Biomech. 1999;32(4):395-400. doi:10.1016/s0021-9290(98)00181-x PMID:10213029
- [8]
Gabriel MT, Wong EK, Woo SL, Yagi M, Debski RE. Distribution of in situ forces in the anterior cruciate ligament in response to rotatory loads. J Orthop Res. 2004;22(1):85-89. doi:10.1016/s0736-0266(03)00133-5 PMID:14656664
- [9]
Wu JL, Seon JK, Gadikota HR, Hosseini A, Sutton KM, Gill TJ, Li G. In situ forces in the anteromedial and posterolateral bundles of the anterior cruciate ligament under simulated functional loading conditions. Am J Sports Med. 2010;38(3):558-563. doi:10.1177/0363546509350110 PMID:20044500
- [10]
Fleming BC, Renstrom PA, Beynnon BD, Engstrom B, Peura GD, Badger GJ, Johnson RJ. The effect of weightbearing and external loading on anterior cruciate ligament strain. J Biomech. 2001;34(2):163-170. doi:10.1016/s0021-9290(00)00154-8 PMID:11165279
- [11]
Taylor KA, Terry ME, Utturkar GM, Spritzer CE, Queen RM, Irribarra LA, Garrett WE, DeFrate LE. Measurement of in vivo anterior cruciate ligament strain during dynamic jump landing. J Biomech. 2011;44(3):365-371. doi:10.1016/j.jbiomech.2010.10.028 PMID:21092960
- [12]
Skelley NW, Castile RM, York TE, Gruev V, Lake SP, Brophy RH. Differences in the microstructural properties of the anteromedial and posterolateral bundles of the anterior cruciate ligament. Am J Sports Med. 2015;43(4):928-936. doi:10.1177/0363546514566192 PMID:25634908
- [13]
Castile RM, Skelley NW, Babaei B, Brophy RH, Lake SP. Microstructural properties and mechanics vary between bundles of the human anterior cruciate ligament during stress-relaxation. J Biomech. 2016;49(1):87-93. doi:10.1016/j.jbiomech.2015.11.016 PMID:26643578
- [14]
Nagai K, Gale T, Chiba D, Su F, Fu FH, Anderst W. The Complex Relationship Between In Vivo ACL Elongation and Knee Kinematics During Walking and Running. J Orthop Res. 2019;37(9):1920-1928. doi:10.1002/jor.24330 PMID:31042309
- [15]
Englander ZA, Garrett WE, Spritzer CE, DeFrate LE. In vivo attachment site to attachment site length and strain of the ACL and its bundles during the full gait cycle measured by MRI and high-speed biplanar radiography. J Biomech. 2020;98:109443. doi:10.1016/j.jbiomech.2019.109443 PMID:31679755
- [16]
Bates NA, Schilaty ND, Krych AJ, Hewett TE. In vivo attachment site to attachment site length and strain of the ACL and its bundles during the full gait cycle measure by MRI and high-speed biplanar radiography. (Published Jan. 2, 2020). J Biomech. 2020;109:109922. doi:10.1016/j.jbiomech.2020.109922 PMID:32698953
- [17]
Englander ZA, Spritzer CE, DeFrate LE. In vivo attachment site to attachment site length and strain of the ACL and its bundles during the full gait cycle measured by MRI and high-speed biplanar radiography: Response. J Biomech. 2020;109:109918. doi:10.1016/j.jbiomech.2020.109918 PMID:32660758
- [18]
Englander ZA, Lau BC, Wittstein JR, Goode AP, DeFrate LE. Patellar Tendon Orientation and Strain Are Predictors of ACL Strain In Vivo During a Single-Leg Jump. Orthop J Sports Med. 2021;9(3):2325967121991054. doi:10.1177/2325967121991054 PMID:33796591
- [19]
Foody JN, Bradley PX, Spritzer CE, Wittstein JR, DeFrate LE, Englander ZA. Elevated In Vivo ACL Strain Is Associated With a Straight Knee in Both the Sagittal and the Coronal Planes. Am J Sports Med. 2023;51(2):422-428. doi:10.1177/03635465221141876 PMID:36625427
- [20]
Foody JN, Tayne S, Englander ZA, Kosinski AS, Amendola A, Spritzer CE, Wittstein JR, DeFrate LE. Does Tibial Plateau Slope and Depth Influence ACL Strain In Vivo?. Orthop J Sports Med. 2024;12(12):23259671241271662. doi:10.1177/23259671241271662 PMID:39669712
- [21]
Kamada K, Gale T, Nukuto K, Musahl V, Anderst W. Anterior Cruciate Ligament Bundles Elongation Patterns During Fast Running and Single-Leg Drop Landing: An In Vivo Biplane Radiography Study. Orthop J Sports Med. 2025;13(12):23259671251399819. doi:10.1177/23259671251399819 PMID:41393806
- [22]
Markolf KL, Gorek JF, Kabo JM, Shapiro MS. Direct measurement of resultant forces in the anterior cruciate ligament. An in vitro study performed with a new experimental technique. J Bone Joint Surg Am. 1990;72(4):557-567. doi:10.2106/00004623-199072040-00014 PMID:2324143
- [23]
Markolf KL, Burchfield DM, Shapiro MM, Cha CW, Finerman GA, Slauterbeck JL. Biomechanical consequences of replacement of the anterior cruciate ligament with a patellar ligament allograft. Part II: forces in the graft compared with forces in the intact ligament. J Bone Joint Surg Am. 1996;78(11):1728-1734. doi:10.2106/00004623-199611000-00014 PMID:8934489
- [24]
Markolf KL, Park S, Jackson SR, McAllister DR. Contributions of the posterolateral bundle of the anterior cruciate ligament to anterior-posterior knee laxity and ligament forces. Arthroscopy. 2008;24(7):805-809. doi:10.1016/j.arthro.2008.02.012 PMID:18589269